
1. 서론
알코올성 간질환은 장기간 또는 과도한 알코올 섭취로 인해 발생하는 대표적인 만성 간질환으로, 알코올성 지방간, 알코올성 간염, 간 섬유화, 간경변, 그리고 간암에 이르기까지 연속적인 병리학적 스펙트럼을 특징으로 한다(Lee, 2020; Yan 등, 2023). 초기 병변에 해당하는 알코올성 지방간은 금주와 적절한 관리를 통해 호전될 수 있으나, 알코올 섭취가 지속될 경우 반복적인 염증 반응으로 인한 간세포 손상이 유발되며, 이는 궁극적으로 간 기능 저하와 간암 발생 위험을 높일 수 있다(Lee, 2020; Yan 등, 2023). 특히 국내에서는 최근 10년간 음주율의 지속적인 증가와 함께 알코올성 간질환의 유병률 및 사망률 또한 동반 상승하고 있으며, 이로 인한 사회경제적 손실이 커지고 있어 효과 적인 예방 및 치료적 접근이 필요한 실정이다(Lee 등, 2020).
섭취된 알코올은 간에서 alcohol dehydrogenase (ADH)와 aldehyde dehydrogenase (ALDH)에 의해 대사되며, 이 과정에서 생성되는 중간산물인 acetaldehyde가 과도하게 축적되면 마이야르 반응을 통해 acetaldehyde-derived advanced glycation end products (AA-AGEs)가 형성된다(Freeman 등, 2005; Tan 등, 2020; Yan 등, 2023). AA-AGEs는 당 유래 AGEs와 유사한 단백질 변형 능력을 가지며, 간세포 손상 및 reactive oxygen species (ROS) 생성을 유도하여 알코올성 간질환의 병인에 관여한다(Hayashi 등, 2013). 또한 만성적인 알코올 노출은 NAD+/NADH 비율 불균형을 초래하여 미토콘드리아 기능 이상과 ROS 과생성을 유도함으로써 산화스트레스를 악화시킨다(Huang 등, 2023; Tan 등, 2020; Yan 등, 2023). 따라서 알코올성 간질환 개선을 위해서는 acetaldehyde 분해 촉진과 ROS 제거를 통한 산화스트레스 조절이 중요하다(Hayashi 등, 2013; Tan 등, 2020). 한편, butylated hydroxyanisole (BHA)와 tert-butylhydroquinone (TBHQ) 등 합성 항산화제는 강력한 항산화 활성을 나타내지만, 세포 독성 및 종양 형성 촉진과 관련된 안전성 문제가 제기되면서(Xu 등, 2021), 이를 대체할 수 있는 안전한 천연 항산화제의 필요성이 강조되고 있다.
엉겅퀴(C. japonicum var. maackii)는 국화과에 속하는 여러해살이 초본 약용 식물로, 특히 한국, 중국, 일본의 산지 및 들판에 널리 분포하며(Wagle 등, 2019), 항염증, 항암, 항당뇨 등 다양한 약리학적 활성을 나타내는 것으로 보고되었다(Kim 등, 2022; Oh 등, 2021). 엉겅퀴에는 hispidulin, chlorogenic acid, silymarin과 같은 생리활성 물질들이 함유되어 있는 것으로 알려져 있다(Kim 등, 2024; Nam 등, 2018; Rodriguez 등, 2017). 특히 엉겅퀴는 scopolamine으로 유도된 기억력 손상 마우스 모델에서 뇌 내 nitric oxide (NO) 생성을 감소시키고 지질 과산화를 억제하며 superoxide dismutase (SOD) 및 glutathione peroxidase (GSH-Px) 발현을 증가시켜 항산화 및 신경보호 효과를 나타내는 것으로 보고되었다(Kim 등, 2022). 또한 엉겅퀴는 비알코올성 간질환 마우스 모델에서 간 지방증, 염증 및 간 섬유화를 억제하여 유의미한 질환 개선 효과를 나타내는 것으로 보고된 바 있다(Che 등, 2021). 그러나 알코올 대사 불균형으로 유발된 환경에서 엉겅퀴 잎 추출물의 간세포 보호 효과에 대한 연구는 제한적이다. 따라서 본 연구에서는 HepG2 세포를 이용하여 H2O2 및 에탄올 유도 손상에 대한 보호 효과를 평가함으로써 산업적 응용 가능성을 검토하였다.
2. 재료 및 방법
Sigma-Aldrich Chemical Co. (St. Louis, MO, USA)로부터 gallic acid, rutin, Folin & Ciocalteu’s phenol reagent, Na2CO3, diethylene glycol, potassium persulfate, 2,2’-azino-bis(3-ethylbenzothiazoline-6-sulfonic acid) (ABTS), vitamin C, 1,1-diphenyl-2-picrylhydrazyl (DPPH), 2,4,6-tris (2-pyridyl)-1,3,5-triazine (TPTZ), iron (III) chloride hexahydrate, iron (II) sulfate, sodium phosphate buffer, fructose, 4-nitrophenyl-α-D-glucopyranoside (PNPG), bovine serum albumin (BSA), sodium azide, pyrogallol, phosphate buffer saline (PBS), α-glucosidase from Saccharomyces cerevisiae, alcohol dehydrogenase from Saccharomyces cerevisiae, aldehyde dehydrogenase, potassium-activated from yeast, 2-mercaptoethanol, streptomycin, potassium chloride (KCl), ethanol, minimum essential medium (MEM), 3-(4,5-dimethylthiazol-2-yl)-2,5-diphenyltetrazolium bromide (MTT), penicillin, 2’,7’-dichlorodihydrofluorescein diacetate (DCF-DA), fetal bovine serum (FBS), H2O2, chlorogenic acid 등을 구입하여 본 실험에 사용하였다. 또한 Daejung Chemicals & Metals Co. (Siheung, Korea)로부터 dimethyl sulfoxide (DMSO), β-nicotinamide adenine dinucleotide hydrate (NAD)를 구입하여 사용하였다. Acarbose, acetaldehyde는 Thermo Fisher Scientific (Waltham, MA, USA)에서 구입하였으며, Tris base는 Phytotechnology laboratories (Lenexa, KS, USA)로부터 구입하였다. FUJIFILM Wako Pure Chemical Corporation (Chuo-Ku, Osaka, Japan)로부터 Aminoguanidine을 구입하여 실험에 사용하였다. 그 외 모든 용매와 시약은 1급 이상 등급을 사용하였다.
본 연구에서는 2025년 2월 전라북도 고창군에서 재배 후 열풍 건조하여 판매되는 엉겅퀴(C. japonicum var. maackii)를 구입하여 분쇄한 뒤 실험에 사용하였다. 분쇄 시료 5 g에 40% 에탄올 250 mL를 첨가한 후, 40°C, 2시간 조건으로 환류 냉각 추출을 진행하였다. 추출용매는 예비실험에서 용매 농도별 총페놀 및 총플라보노이드 함량을 비교한 결과와 산업적 적용 가능성을 종합적으로 고려하여 40% 에탄올로 선정하였다. 이후 No. 2 정성여과지(Whatman PLC, Kent, UK)를 이용하여 감압 여과하였고 여과된 추출물을 회전진공농축기(N-N series, Eyela Co., Tokyo, Japan)로 농축하였다. 농축된 시료는 동결건조기(FDU-8612, Operon, Gimpo, Korea)로 건조한 후 −20°C에 보관하며 사용하였다.
엉겅퀴 잎 40% 에탄올 추출물(C. japonicum var. maackii leaf 40% ethanolic extract, CJL)에 포함된 생리활성 물질은 고성능 액체크로마토그래피(high performance liquid chromatograph, HPLC)를 이용하여 분석하였다. HPLC 시스템(Ultimate 3000 series, Dionex, Sunnyvale, CA, USA)을 사용하였으며 column의 경우 C18 (250 × 4.6 mm, 5 μm; YMC-Triart, YMC Korea, Seongnam, Korea)을 사용하였다. 시료는 50% methanol로 용해한 뒤 0.45 μm filter로 여과하여 20 μL씩 주입하였다. 이동상으로는 0.1% formic acid가 포함된 증류수(A)와 0.1% formic acid가 포함된 methanol (B)을 사용하였으며 조성비의 경우 0-10% B (0-5분), 10-30% B (5-20분), 30-90% B (20-38분), 90-0% B (38-40분)로 설정하였다. 유속은 1.0 mL/min으로 설정하였고, 검출은 diode array detector (DAD)를 이용하여 310 nm에서 수행하였다. 정량분석을 위해 표준물질을 5, 10, 20, 50, 100 μg/mL 5개 농도로 단계 희석하여 시료와 동일한 조건에서 분석한 후, 표준물질의 피크 면적을 바탕으로 표준곡선을 작성하였고, 시료의 피크 면적을 표준곡선에 대입하여 생리활성 물질의 함량을 산출하였다.
총폴리페놀 함량 및 총플라보노이드 함량은 기존에 보고된 방법을 일부 변형하여 수행하였다(Jang 등, 2012).
총폴리페놀 함량은 시료에 3차 증류수, Folin & Ciocalteu’s phenol reagent 및 7% Na2CO3 용액을 순차적으로 첨가하여 실온에서 반응시켰으며 흡광도의 경우 760 nm에서 분광광도계(UV‑1800, Shimadzu, Tokyo, Japan)를 이용하여 분석하였다. 이후 gallic acid를 표준물질로 하여 작성한 표준곡선에 대입하여 그 결과를 mg gallic acid equivalents (GAE)/g extract로 환산하였다.
총플라보노이드 함량의 경우 시료에 diethylene glycol과 1 N NaOH를 가한 뒤 30°C에서 반응시켰으며, 흡광도의 경우 420 nm에서 분광광도계(UV‑1800, Shimadzu)를 이용하여 분석하였다. 이후 rutin을 표준물질로 하여 작성한 표준곡선에 대입하여 그 결과를 mg rutin equivalents (RE)/g extract로 환산하였다.
ABTS 라디칼 소거 활성을 측정하기 위한 ABTS radical solution은 100 mM sodium phosphate buffer (pH 7.4)에 150 mM NaCl, 2.45 mM potassium persulfate 및 7 mM ABTS를 첨가한 뒤 68°C에서 30분간 반응시켜 제조하였다. 이후 반응액을 실온에서 10분간 냉각하고 0.45 μm filter로 여과한 뒤, 4°C에서 24시간 보관하여 실험에 사용하였다. 측정의 경우 ABTS radical solution을 증류수로 희석하여 734 nm에서 흡광도가 0.70 ± 0.02가 되도록 조정한 ABTS 용액 980 μL에 시료 20 μL를 섞고, 37°C에서 10분 반응시켰으며, 흡광도의 경우 734 nm에서 분광광도계(UV-1800, Shimadzu)를 이용하여 분석하였다.
DPPH 라디칼 소거 활성을 측정하기 위한 DPPH 용액은 0.1 mM DPPH를 80% methanol에 용해한 뒤, 514 nm에서 흡광도가 1.00 ± 0.02가 되도록 희석하여 제조하였다. 이후 DPPH 용액 1.45 mL에 시료 50 μL를 혼합하여 암조건에서 30분간 반응시켰으며, 흡광도의 경우 514 nm에서 분광광도계(UV-1800, Shimadzu)를 이용하여 분석하였다.
철 환원력은 0.3 M sodium acetate buffer (pH 3.6), 20 mM FeCl3, 그리고 40 mM HCl이 포함된 10 mM TPTZ 용액을 10:1:1 비율로 혼합하여 반응액을 제조한 후 측정하였다. 준비한 반응액 1.5 mL에 시료 50 μL를 혼합하고, 암실에서 30분간 반응시켰으며, 흡광도의 경우 593 nm에서 UV-1800 분광광도계(Shimadzu, Tokyo, Japan)로 분석하였다.
MDA 생성 억제 활성을 측정하기 위하여 4주령의 C57BL/6 마우스를 Samtako (Osan, Korea)로부터 구입하였다. 마우스는 12시간 명암 주기를 유지하며, 온도 22 ± 2°C 및 습도 50-55%의 항온, 항습 조건에서 사용하였다. 실험을 위해 마우스의 간 조직을 적출한 뒤, 간 조직 1 g당 10배량의 Tris-HCl buffer (pH 7.4)를 가하여 균질화하였다. 균질액은 12,000 ×g, 4°C에서 15분간 원심분리하였고, 상등액을 실험에 사용하였다. 시료 0.1 mL, 10 μM FeSO4 0.2 mL, 상등액 0.1 mL, 0.1 mM vitamin C 0.2 mL를 혼합한 뒤 37°C에서 1시간 반응시켰다. 반응 후 30% trichloroacetic acid (TCA) 0.1 mL, 1% thiobarbituric acid (TBA) 0.5 mL를 가하여 80°C에서 20분간 반응시켰다. 이후 원심분리하여 얻은 상등액의 흡광도를 532 nm에서 분광광도계(UV-1800, Shimadzu)를 이용하여 분석하였다. 또한 경상국립대학교 동물윤리심의위원회의 승인을 거쳐 본 동물실험을 진행하였다(경상국립대학교 동물실험 승인번호: GNU-250717-M0164, 승인일: 2025.07.17.).
α-Glucosidase 억제 효과는 sodium phosphate buffer (0.1 M, pH 6.9) 50 μL에 시료 50 μL와 α-glucosidase 용액(0.5 unit/mL) 50 μL를 넣고 37°C에서 10분간 반응시킨 뒤, PNPG 용액(5 mM) 50 μL를 추가하여 37°C에서 5분간 반응시켜 분석하였다. 반응용액의 흡광도는 405 nm에서 microplate reader (Epoch 2, BioTek Instruments, Inc., Winooski, VT, USA)를 이용하여 측정하였다.
AGEs 생성 억제 활성은 0.2 M sodium phosphate buffer (pH 7.4), 50 mg/mL BSA 0.3 mL, 0.02% sodium azide 0.9 mL, 1.25 M fructose 0.3 mL 및 시료 100 μL를 혼합하여 37°C에서 3일간 반응시킨 후 분석하였다. 반응이 끝난 뒤 각 반응액을 black 96-well plate에 100 μL씩 분주하였으며 형광의 경우 들뜸 파장 370 nm와 방출 파장 440 nm에서 형광광도계(Infinite F200, Tecan, Mannedorf, Switzerland)를 이용하여 분석하였다.
ADH 활성은 Bergmeyer의 방법을 변형하여 측정하였다(Cha 등, 2009). 20 mM NAD 20 μL, 0.2 M ethanol 100 μL, 1 M Tris buffer (pH 8.8) 300 μL 및 증류수 400 μL를 혼합한 후 시료 50 μL를 첨가하여 25°C 조건에서 10분간 반응시켰다. 이후 반응액에 5 units/mL ADH 50 μL를 첨가하여 반응을 개시하였다. 흡광도의 경우 340 nm에서 microplate reader (Epoch 2, BioTek Instruments Inc.)를 이용하여 분석하였으며, ADH 활성은 시료를 첨가하지 않은 대조군 대비 상대 활성(%)으로 계산하였다.
ALDH 활성은 Koivula 및 Koivusalo의 방법을 변형하여 측정하였다(Cha 등, 2009). 20 mM NAD 20 μL, 1 M Tris buffer (pH 8.0) 80 μL, 증류수 400 μL, 3 M KCl 20 μL, 0.1 M acetaldehyde 20 μL 및 0.33 M 2-mercaptoethanol 20 μL를 포함한 용액을 제조하였다. 이후 제조한 용액 30 μL에 시료 30 μL를 혼합하고 25°C 조건에서 10분간 예비 반응시켰으며, 1 unit/mL ALDH 10 μL를 추가하여 반응을 개시하였다. 흡광도의 경우 340 nm에서 microplate reader (Epoch 2, BioTek Instruments Inc.)를 이용하여 분석하였으며, ALDH 활성은 시료를 첨가하지 않은 대조군 대비 상대 활성(%)으로 계산하였다.
본 연구에 사용된 HepG2 세포(KCLB-88065, Korean Cell Line Bank, Seoul, Korea)는 10% FBS, 50 unit/mL penicillin 및 100 μg/mL streptomycin이 포함된 MEM 배지에서 37°C, 5% CO2 조건으로 배양하였다.
세포 생존율 측정을 위해 HepG2 세포를 96-well plate에 1 × 10⁴ cells/well로 분주하여 24시간 배양 후 시료 30 μL를 처리하여 24시간 배양하였다. 이후 200 μM H2O2 10 μL를 3시간 처리하였으며, 에탄올 처리군에서는 시료 처리 3시간 후 200 μM 에탄올을 24시간 처리하였다. 반응 종료 후 10 μM MTT 시약을 3시간 처리하고 배지를 제거한 뒤 DMSO 100 μL를 첨가하였으며, 흡광도의 경우 570 nm와 655 nm에서 microplate reader (Epoch 2, BioTek Instruments Inc.)를 이용하여 분석하였다.
간세포 내 산화스트레스 수준은 black 96-well plate에 1 × 10⁴ cells/well로 분주하여 24시간 배양 후 시료 40 μL를 처리하여 24시간 배양하였다. 이후 200 μM H2O2 20 μL를 처리하여 3시간 동안 반응시켰으며, 에탄올 처리군에서는 시료를 처리하고 3시간 후 200 μM 에탄올을 처리하여 24시간 반응시켰다. 반응 종료 후 10 μM DCF-DA 40 μL를 가하여 50분간 반응시켰으며, 형광의 경우 들뜸 파장 485 nm 및 방출 파장 535 nm에서 형광광도계(Infinite F200, Tecan)로 분석하였다.
모든 실험은 3회 이상 반복하여 수행하였고, 결과는 평균(mean)과 표준편차(SD)로 제시하였다. Independent sample t-test와 analysis of variance (ANOVA) 및 그래프와 도표 작성에는 GraphPad Prism (version 10, GraphPad Software Inc., Boston, MA, USA)을 사용하였고 Duncan’s multiple range test에는 SAS software (ver. 9.4, SAS Institute Inc., Cary, NC, USA)를 사용하였다. 또한 Shapiro-Wilk test로 각 데이터의 정규성을 확인하였다(https://www.statskingdom.com). 두 집단 간 비교는 independent sample t-test, 세 집단 이상은 ANOVA 후 Duncan’s multiple range test를 실시하여 p < 0.05에서 유의성을 검증하였다.
3. 결과 및 고찰
CJL에 포함된 생리활성 물질을 확인하기 위해 HPLC 분석을 진행한 결과는 Fig. 1A와 같으며 정량분석을 위해 표준물질로서 chlorogenic acid를 분석한 결과는 Fig. 1B와 같다. 분석은 310 nm 파장에서 수행하였으며, UV-Vis 스펙트럼과 표준물질의 retention time을 비교하여 일치 여부를 확인하였다. HPLC 분석 결과, 310 nm 파장에서 23.02분에 나타난 피크는 chlorogenic acid 표준물질의 피크(23.07분)와 머무름 시간이 유사하였으며, similarity는 997.55로 확인되었다. 이후 chlorogenic acid 표준물질을 이용하여 작성한 표준곡선에 동정된 피크의 면적값을 대입하여 정량한 결과, CJL 중 chlorogenic acid의 함량은 27.36 μg/mg (dry weight)으로 나타났다. 또한 33.19분에 검출된 피크는 선행연구에서 보고된 엉겅퀴 구성 성분의 용출 특성과 비교하였다. Jang과 Kim(2016)은 엉겅퀴 추출물의 HPLC 분석에서 chlorogenic acid가 비교적 앞선 구간에서 용출되는 반면, linarin 등 상대적으로 극성이 낮은 플라보노이드류는 분석 후반부에서 용출되는 경향을 보고하였다. 본 연구에서 33.19분에 검출된 피크 역시 이러한 용출 특성에 기인한 linarin 또는 이와 유사한 플라보노이드 계열 성분일 가능성이 있다.
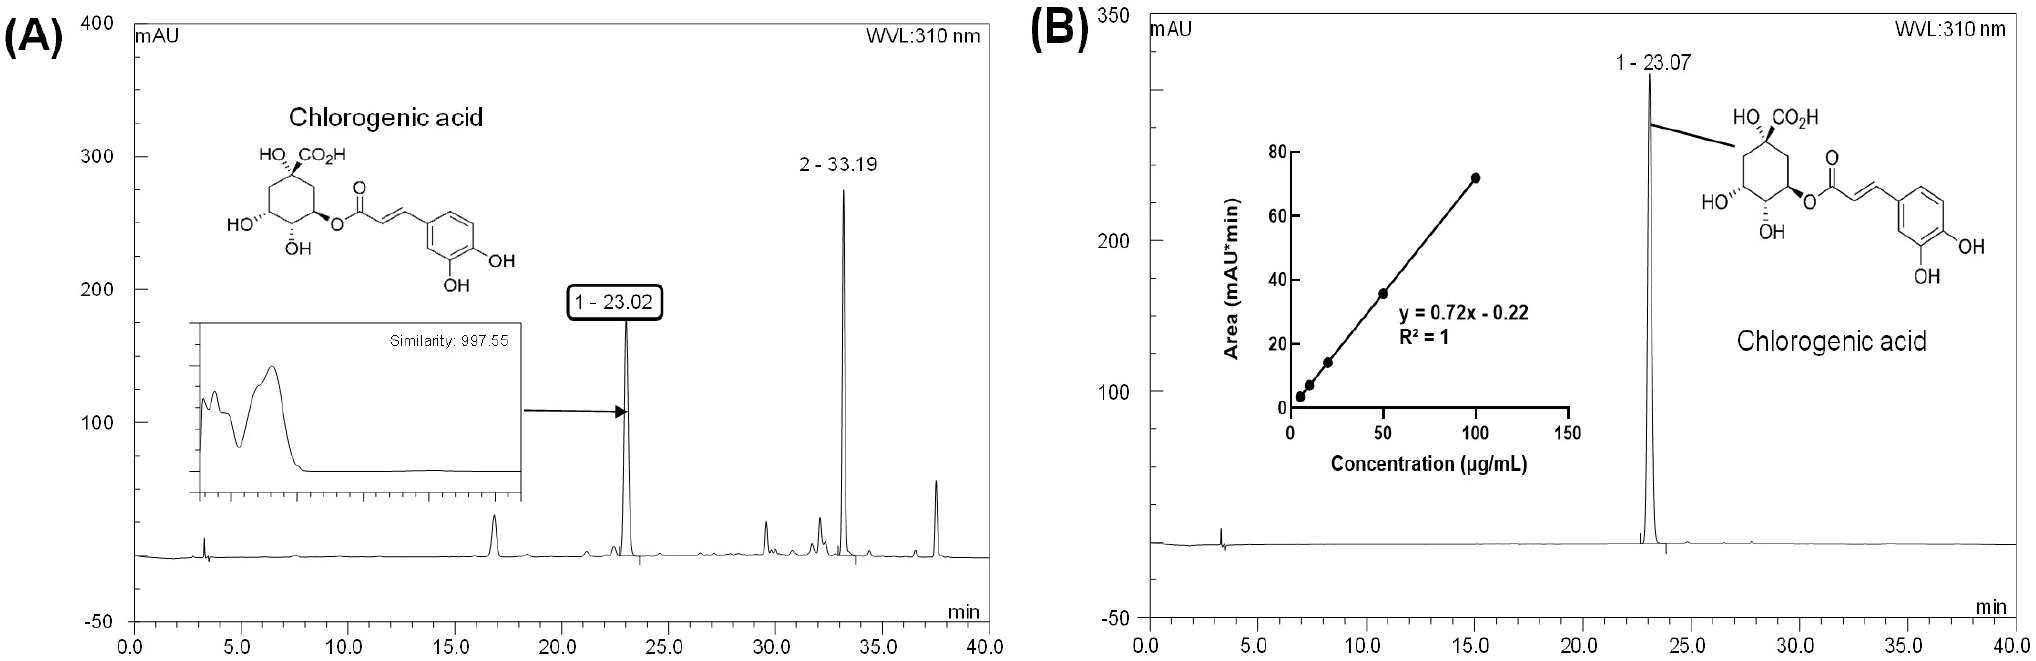
Chlorogenic acid는 자연계에 널리 존재하는 생리활성 화합물로, caffeic acid와 quinic acid의 ester 결합으로 이루어진 화합물이다(Huang 등, 2023). Chlorogenic acid는 nuclear factor-kappa B (NF-κB), mitogen-activated protein kinase (MAPK), nuclear factor erythroid 2-related factor 2 (Nrf2) 등의 주요 신호전달 경로를 조절함으로써 tumor necrosis factor-α (TNF-α), interleukin-1 beta (IL-1β), interleukin-6 (IL-6) 등 염증성 사이토카인의 발현을 억제하고, 과도한 염증 반응으로부터 세포와 조직을 보호하는 것으로 알려져 있다(Huang 등, 2023). 특히 chlorogenic acid는 알코올 유도 간 손상 C57BL/6 마우스 모델에서 미토콘드리아 유래 ROS 및 세포질 내 ROS를 제거함으로써 알코올 섭취에 의한 산화스트레스를 완화하고, DNA 손상 및 염증성 신호전달 경로의 활성화를 억제함으로써 알코올 유발 지방간, 세포 사멸 및 섬유화를 감소시키는 것으로 보고된 바 있다(Kim 등, 2018). 이러한 연구 결과를 종합하여 볼 때, CJL의 주요 페놀성 지표 화합물인 chlorogenic acid가 추출물 내 다른 페놀성 성분들과 함께 본 연구에서 관찰된 항산화 활성 및 간세포 보호 효과에 복합적으로 기여하였을 가능성을 뒷받침한다. 그러나 chlorogenic acid를 제외한 주요 피크들은 동정되지 않았으므로, 향후 liquid chromatography-tandem mass spectrometry (LC-MS/MS) 등을 활용한 생리활성 성분의 동정 및 정량 분석이 필요하다.
간은 알코올 대사를 비롯한 활발한 대사 과정으로 인해 ROS 생성에 지속적으로 노출되며, 과도하게 생성된 ROS는 세포막의 지질 과산화, 미토콘드리아 기능 이상 및 세포 사멸을 유도하여 간세포 손상을 악화시킬 수 있다(Tan 등, 2020). 따라서 ROS를 제거하고 지질 과산화를 억제하는 항산화 활성은 산화스트레스에 의한 간세포 손상을 완화하는 데 중요한 역할을 할 수 있다. 이에 본 연구에서는 H2O2 및 ethanol에 의해 유도된 간세포 손상에 대한 CJL의 보호 가능성을 뒷받침하기 위해, 항산화 성분 함량과 라디칼 소거능, 철 환원력 및 지질 과산화 억제 활성을 평가하였다.
먼저 CJL의 항산화 활성에 기여할 수 있는 페놀성 성분의 함량을 확인하기 위해 총페놀 및 총플라보노이드 함량을 측정하였다(Table 1). CJL의 총페놀 함량은 68.58 ± 0.90 mg GAE/g extract이었으며, 총플라보노이드 함량은 47.30 ± 2.78 mg RE/g extract으로 나타났다. 같은 국화과 식물인 Eclipta alba의 80% 알코올 추출물에서 총페놀 함량이 31.67 ± 3.82 mg GAE/g extract으로 보고된 것과 비교하면, CJL은 상대적으로 높은 총페놀 함량을 함유한 것으로 확인되었다(Yadav 등, 2017). 폴리페놀과 플라보노이드는 다수의 수산기를 바탕으로 전자 또는 수소를 제공하여 자유라디칼을 안정화하고 산화반응을 억제하는 대표적인 식물 유래 항산화 성분이다(Huang 등, 2023). 엉겅퀴에는 chlorogenic acid와 hispidulin을 포함한 다양한 페놀성 화합물이 함유되어 있으며, 이들 성분은 자유라디칼 소거 및 지질 과산화 억제 활성을 나타내는 것으로 보고되어 있다(Kim 등, 2024; Patel 등, 2017; Rodriguez 등, 2017). 따라서 본 연구에서 확인된 총페놀 및 총플라보노이드 함량은 CJL의 항산화 활성을 구성하는 화학적 기반으로 작용했을 가능성이 있다. 다만 chlorogenic acid를 제외한 개별 성분의 함량과 활성을 직접 평가하지 않았으므로, CJL의 항산화 효과는 특정 단일 성분보다 추출물에 함유된 다양한 페놀성 화합물의 복합적인 작용과 관련되었을 가능성이 있다.
| TPC1) | TFC2) | ABTS3) | DPPH4) | FRAP5) | |
|---|---|---|---|---|---|
| CJL | 68.58±0.90 | 47.30±2.78 | 996.18±10.55a | 2,755.54±14.90a | 0.52±0.01b |
| Vitamin C | 111.53±0.70b | 121.24±3.27b | 1.79±0.02a |
Results of TPC and TFC are presented as mg GAE/g and mg RE/g, respectively. Results of ABTS and DPPH are presented as IC50 value (μg/mL). Result of FRAP is presented as absorbance value at 593 nm. All values are mean ± SD (n = 3). Different small letters (a,b) indicate statistically significant differences between the CJL and vitamin C at p < 0.05 by independent sample t-test.
CJL이 자유라디칼을 제거하고 산화 ․ 환원반응을 조절할 수 있는지를 확인하기 위해 ABTS 및 DPPH 라디칼 소거 활성과 철 환원력을 측정하였다(Table 1). ABTS 라디칼 소거 활성에서 CJL의 IC50은 996.18 ± 10.55 μg/mL로 나타났으며, 양성대조군인 vitamin C의 IC50은 111.53 ± 0.70 μg/mL이었다. DPPH 라디칼 소거 활성에서는 CJL과 vitamin C의 IC50이 각각 2,755.54 ± 14.90 μg/mL 및 121.24 ± 3.27 μg/mL로 확인되었다. CJL은 양성대조군인 vitamin C보다 낮은 라디칼 소거 활성을 나타냈으나, 천연물 유래 추출물임을 고려할 때 유의미한 ABTS 및 DPPH 라디칼 소거 활성을 나타낸 것으로 사료된다. 또한 같은 국화과 식물인 Aster yomena의 60% 에탄올 추출물에서 ABTS 및 DPPH 라디칼 소거 IC50이 각각 1,640.30 및 2,655.10 μg/mL로 보고된 것과 비교하면, CJL은 DPPH 라디칼 소거 활성에서는 유사한 수준을 보인 반면, ABTS 라디칼 소거 활성에서는 상대적으로 낮은 IC50을 나타내어 천연물 유래 추출물로서 비교적 우수한 라디칼 소거 잠재력을 보였다(Kim 등, 2024). 선행연구에서도 엉겅퀴 에탄올 추출물은 폴리페놀과 플라보노이드를 함유하고 유의적인 ABTS 및 DPPH 라디칼 소거 활성을 나타내는 것으로 보고되어 본 연구 결과와 유사한 경향을 보였다(Jang 등, 2012; Kim 등, 2024; Nam 등, 2018). 한편, 항산화 활성은 라디칼 소거능 외에도 전자 공여를 통한 환원력으로도 평가할 수 있다(Jang과 Kim, 2016). 이에 CJL의 철 환원력을 측정한 결과, CJL은 1,000 μg/mL에서 0.52 ± 0.01의 흡광도 값을 나타냈으며, vitamin C는 200 μg/mL에서 1.79 ± 0.02로 나타났다. CJL은 양성 대조군인 vitamin C보다 낮은 흡광도 값을 나타냈지만 천연물 유래 추출물임을 고려할 때 유의미한 환원력을 지니고 있는 것으로 사료된다. 이러한 결과는 엉겅퀴 추출물이 철 환원력과 전자공여능을 나타낸다고 보고한 Jang 등(2012)의 연구 결과와도 유사한 경향을 보인다.
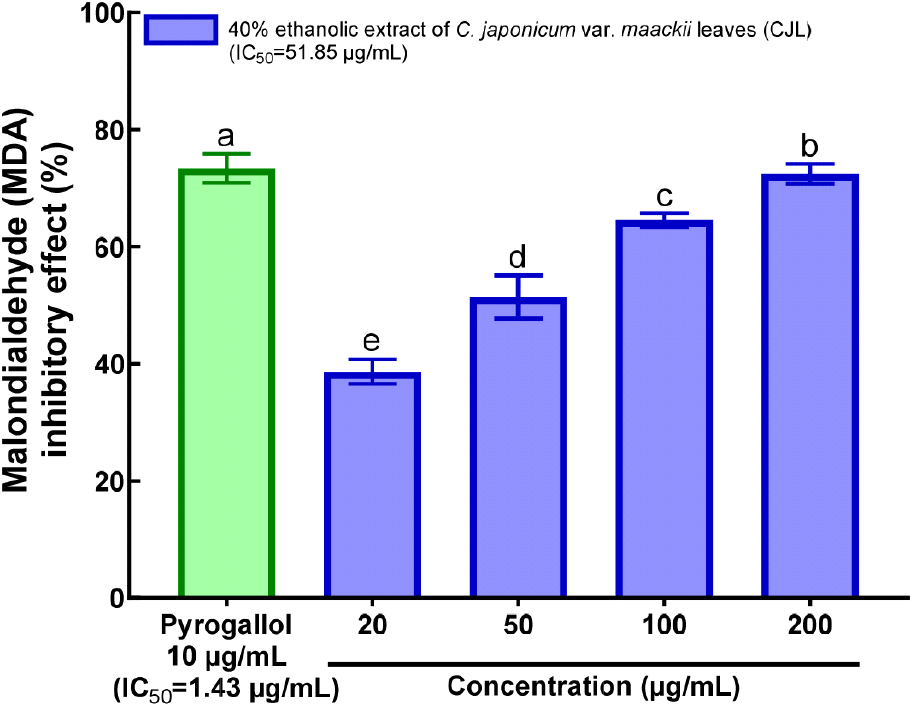
MDA는 ROS에 의해 유도되는 지질 과산화의 대표적인 최종 산물로, 단백질 및 핵산과 반응하여 세포막과 미토콘드리아의 기능을 손상시킬 수 있다(Tan 등, 2020). 이에 CJL의 라디칼 소거 및 전자공여 활성이 간 조직 수준의 지질 과산화 억제로 이어질 수 있는지를 확인하기 위해 마우스 간 균질액에서 MDA 생성 억제 활성을 측정하였다(Fig. 2). CJL의 IC50은 51.85 μg/mL로 나타났으며, 양성대조군인 pyrogallol의 IC50은 1.43 μg/mL로 확인되었다. 본 연구에서 확인된 CJL의 MDA 생성 억제 활성(IC50 = 51.85 μg/mL)은 같은 국화과 식물인 Eclipta alba의 80% 알코올 추출물이 간 균질액에서 나타낸 IC50 (126.99 μg/mL)보다 낮았으며 CJL은 비교적 우수한 억제 활성을 보였다(Yadav 등, 2017). 이러한 CJL의 MDA 생성 억제 효과는 엉겅퀴 추출물이 산화적 손상 모델에서 ROS 및 지질 과산화를 감소시키고, 비알코올성 지방간 모델에서 간 내 MDA 축적을 억제하였다는 선행연구 결과와 유사한 경향을 보였다(Che 등, 2021; Kim 등, 2022).
종합하면, CJL은 페놀성 화합물을 함유하고 있으며, ABTS 및 DPPH 라디칼 소거 활성과 철 환원력을 통해 자유라디칼을 제거하고 전자를 공여할 수 있는 항산화 특성을 나타냈다. 또한 마우스 간 균질액에서 MDA 생성을 억제한 결과는 이러한 항산화 활성이 자유라디칼의 제거와 환원에 그치지 않고, 간 조직에서 발생하는 지질 과산화 연쇄반응의 진행을 억제할 가능성이 있음을 보여준다. 따라서 CJL의 라디칼 소거, 전자공여 및 지질 과산화 억제 활성은 산화스트레스로 유발되는 간세포 손상을 완화하는 데 상호보완적으로 기여할 가능성이 있으며, H2O2 및 에탄올로 유도된 HepG2 세포 손상에 대한 CJL의 보호 효과를 뒷받침하는 근거가 될 수 있다.
만성적인 알코올 섭취는 인슐린 신호전달과 포도당 항상성을 교란하여 인슐린 저항성과 고혈당을 유발할 수 있으며(Carr와 Correnti, 2015), 알코올성 간질환 환자에서는 제2형 당뇨병이 빈번하게 동반되는 것으로 보고되어 있다(Ward 등, 2025). 지속적인 고혈당은 AGEs 생성을 촉진하며, AGEs와 receptor for advanced glycation end-products (RAGE)의 결합은 세포 내 ROS 생성과 NF-κB 매개 염증반응을 증폭시켜 간세포에 추가적인 대사적 ․ 산화적 부담을 유발할 수 있다(Takeuchi 등, 2017). 따라서 본 연구에서는 CJL이 혈당 상승 및 당화반응과 관련된 대사적 부담을 완화할 가능성이 있는지를 확인하기 위해 α-glucosidase 및 AGEs 생성 억제 활성을 평가하였다.
α-Glucosidase는 식이성 탄수화물을 흡수 가능한 단당류로 분해하여 식후 혈당 상승에 관여하는 소화효소이다(Pan 등, 2024; Takeuchi 등, 2017). 따라서 α-glucosidase 억제는 식후 혈당 상승을 완화시켜 지속적인 고혈당에 의한 단백질 당화 반응을 억제할 수 있는 전략으로 제시되고 있다(Pan 등, 2024). 하지만 acarbose 등 합성 억제제는 위장관계 부작용이 보고되어 있어, 이를 대체할 천연물 유래 억제제에 대한 관심이 높아지고 있다(Rosak 등, 2012). 이를 바탕으로 CJL의 α-glucosidase 억제 활성을 측정한 결과, IC50은 631.53 μg/mL로 나타났으며, 양성대조군인 acarbose의 IC50은 153.21 μg/mL이었다(Fig. 3A). 같은 국화과 식물인 Taraxacum coreanum 메탄올 추출물의 α-glucosidase 억제 IC50이 1,623.08 ± 184.40 μg/mL로 보고된 것과 비교하면, CJL은 631.53 μg/mL의 상대적으로 낮은 IC50을 나타내어 비교적 우수한 α-glucosidase 억제 잠재력을 보였다(Lee와 Whang, 2018). CJL이 보인 α-glucosidase 억제 활성은 식후 혈당 상승을 완화함으로써 지속적인 고혈당으로 유도되는 단백질 당화와 산화스트레스 부담을 감소시킬 수 있다는 점에서 간세포 보호에 기여할 수 있을 것으로 사료된다. 또한 선행연구에서 chlorogenic acid는 α-glucosidase와 비공유 결합을 형성하여 효소 활성을 억제하는 것으로 보고되었다(Jiang 등, 2025). 따라서 CJL의 α-glucosidase 억제 활성에는 chlorogenic acid를 포함한 다양한 페놀성 화합물이 복합적으로 관여했을 가능성이 있다. 그러나 본 연구에서는 chlorogenic acid 단독 처리군이나 다른 주요 구성 성분의 활성을 비교하지 않았으므로, 관찰된 효소 억제 효과를 특정 성분의 작용으로 직접 해석하기에는 한계가 있다. 향후에는 chlorogenic acid 및 추가로 동정된 주요 성분의 단독 ․ 혼합 처리와 분획물별 활성 비교를 통해 CJL의 α-glucosidase 억제 활성에 기여하는 성분과 그 상호작용을 구체적으로 규명할 필요가 있다.
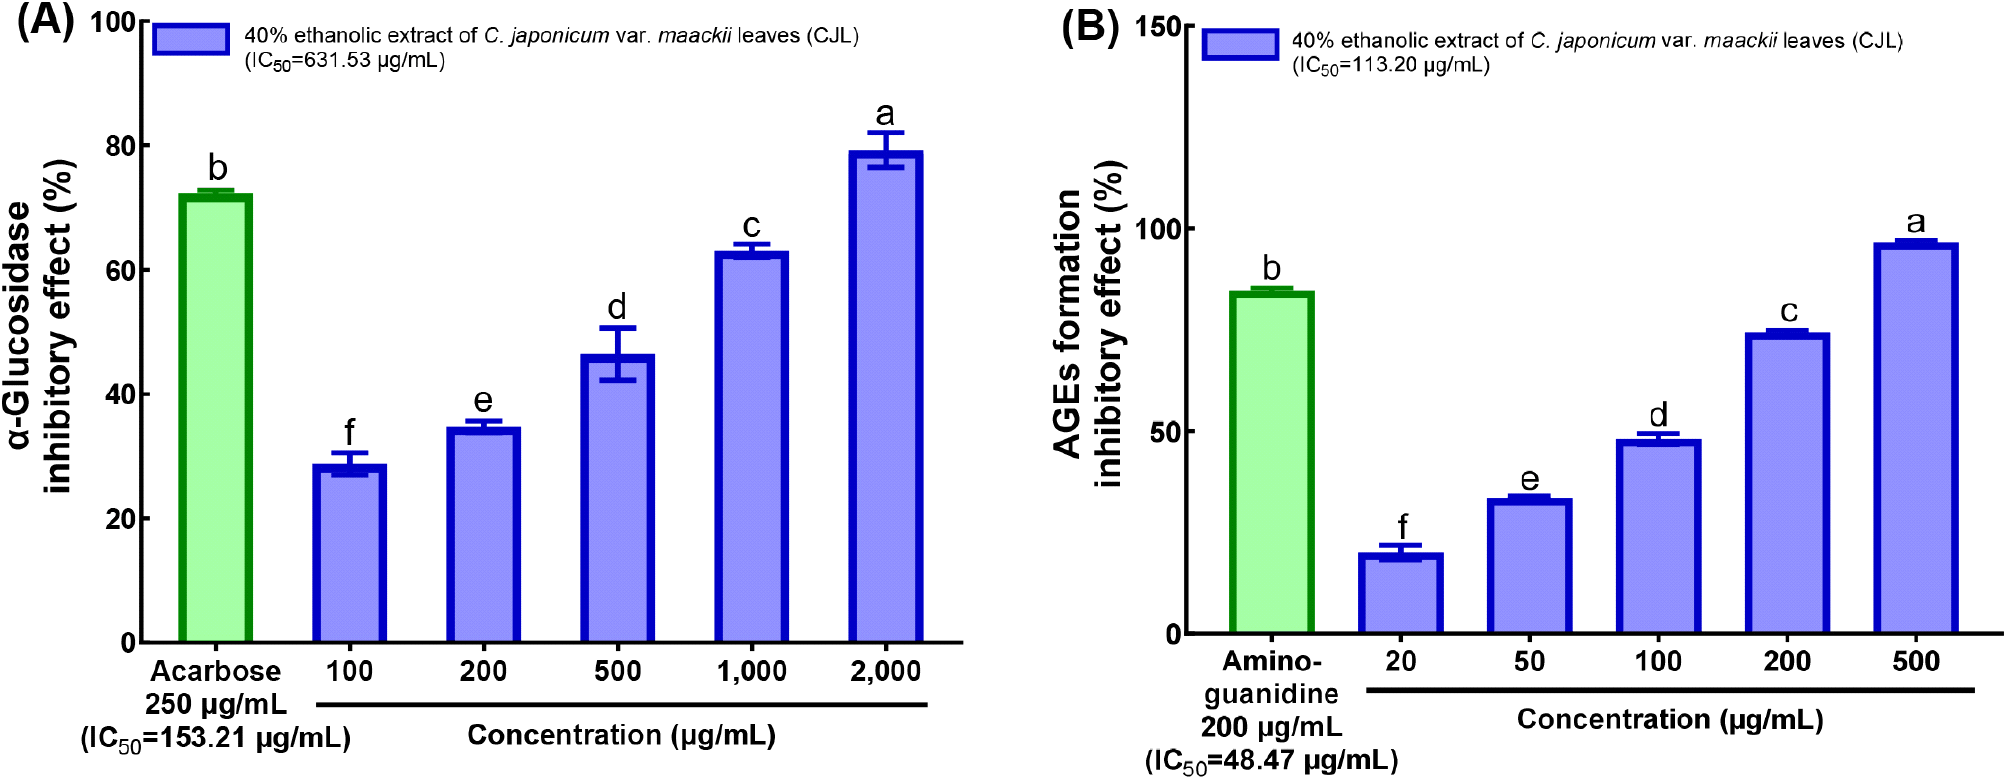
지속적인 고혈당에 의해 생성되는 AGEs는 RAGE 신호를 활성화하여 산화스트레스와 염증반응을 촉진할 수 있으므로(Hayashi 등, 2013), CJL의 항당화 가능성을 확인하기 위해 AGEs 생성 억제 활성을 측정하였다(Fig. 3B). 그 결과, CJL의 IC50은 113.20 μg/mL로 나타났으며, 양성대조군인 aminoguanidine의 IC50은 48.47 μg/mL이었다. 한편, 같은 국화과 식물인 T. coreanum 메탄올 추출물의 AGEs 생성 억제 IC50은 360.41 ± 23.58 μg/mL로 보고되었다(Lee와 Whang, 2018). 이와 비교하여 CJL은 상대적으로 낮은 IC50을 나타내어, 국화과 식물 유래 추출물로서 유의미한 AGEs 생성 억제 잠재력을 보였다. 이러한 결과는 CJL이 AGEs 생성을 억제할 수 있음을 보여주며, 엉겅퀴 추출물이 BSA/glucose 및 aldehyde-derived glycation 모델에서 AGEs 형성을 억제하였다는 선행연구 결과와도 유사한 경향을 보였다(Yoon 등, 2022).
종합하면, CJL은 α-glucosidase 활성과 AGEs 생성을 억제하여 식후 혈당 상승 및 당화반응과 관련된 대사적 부담을 완화할 가능성을 나타냈다. 이러한 항당화 활성은 AGE-RAGE 신호에 따른 ROS 생성과 NF-κB 매개 염증반응을 감소시킴으로써 간세포 보호에 보완적으로 기여할 가능성이 있다. 그러나 관련 신호전달 경로와 세포 보호 효과 간의 직접적인 인과관계는 검증되지 않았으므로 추가적인 기전 연구가 필요하다.
섭취된 알코올은 주로 ADH에 의해 acetaldehyde로 산화된 후, ALDH에 의해 상대적으로 독성이 낮은 acetate로 전환된다. 그러나 알코올 대사 과정에서 발생하는 NAD+/NADH 비율의 변화와 cytochrome P450 2E1 (CYP2E1)을 포함한 대사 경로의 활성화는 ROS 생성을 증가시킬 수 있으며(Tan 등, 2020), 생성된 ROS는 ALDH 활성을 저하시킬 수 있는 것으로 보고되어 있다(Moon 등, 1993). 또한 ALDH의 처리 능력을 초과하여 축적된 acetaldehyde는 강한 친전자성을 바탕으로 단백질, DNA 및 지질과 결합하여 adducts를 형성하고, 산화스트레스와 염증반응을 유발함으로써 간세포 손상을 악화시킬 수 있다(Lai 등, 2024). 따라서 알코올 유래 간세포 손상을 완화하기 위해서는 acetaldehyde의 축적을 감소시키는 동시에, 알코올 대사 과정에서 증가하는 ROS를 억제하여 산화스트레스를 완화하는 것이 중요하다(Chen 등, 2015; Tan 등, 2020). 이에 본 연구에서는 CJL이 알코올 대사 관련 효소 반응에 미치는 영향을 확인하기 위해 ADH 및 ALDH 활성을 측정하였다.
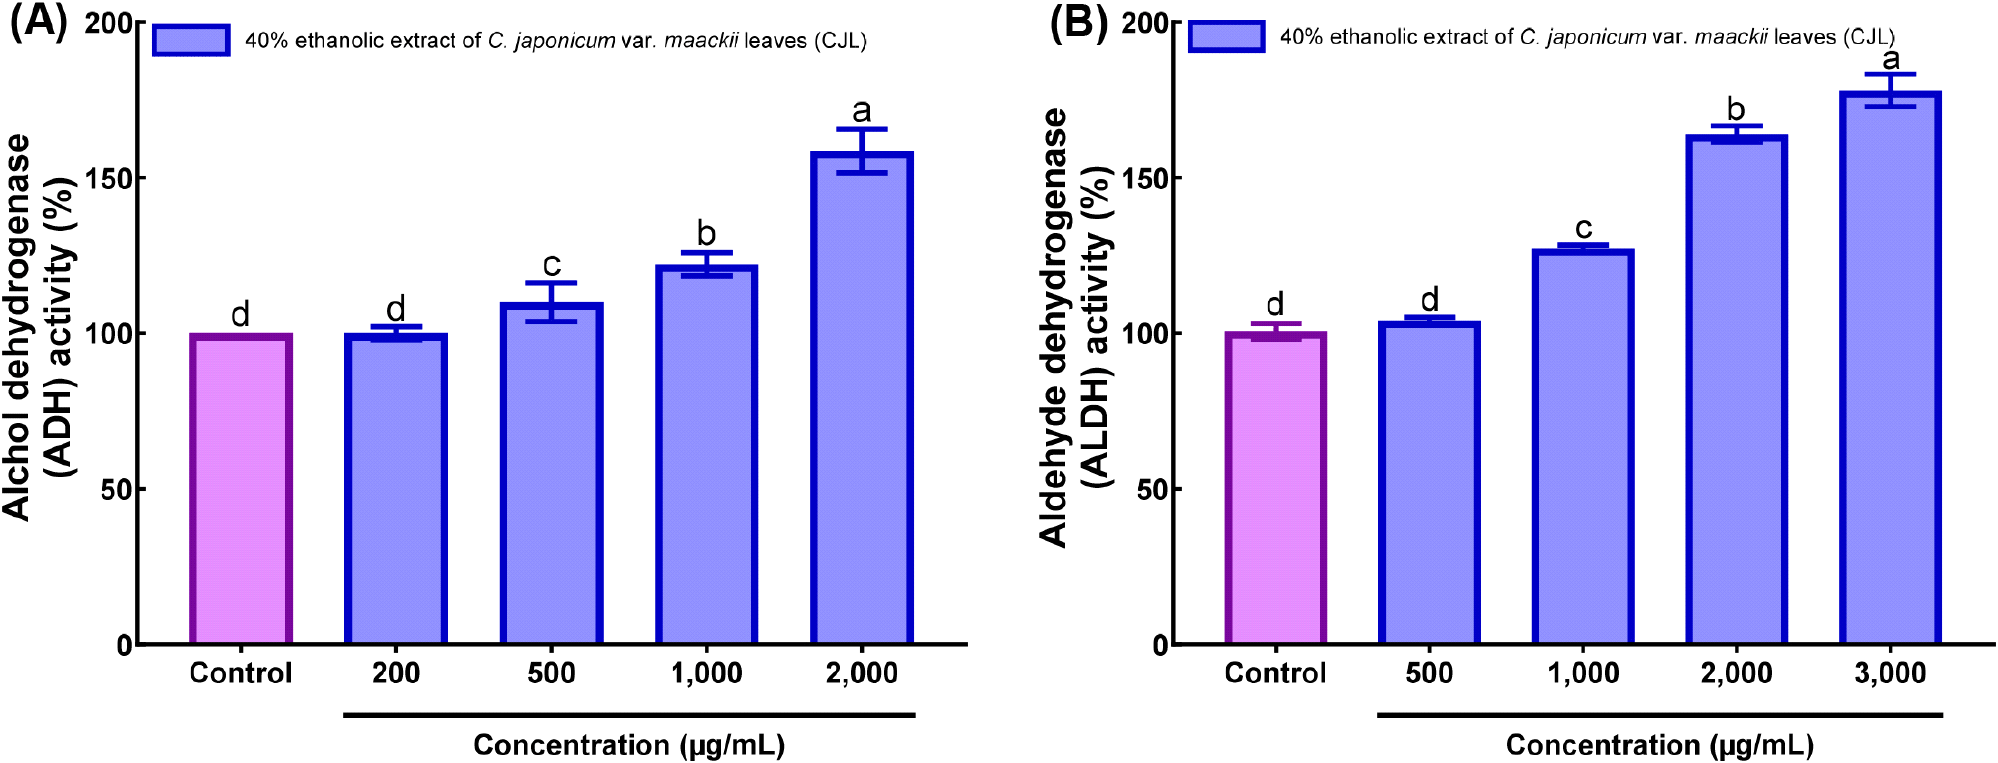
ADH 활성 측정 결과, CJL은 200 μg/mL 농도에서 100.20%로 대조군의 100.00%와 유사한 활성을 나타냈으며, 500, 1,000 및 2,000 μg/mL 농도에서는 각각 110.00, 122.14 및 158.57%로 농도 증가에 따라 활성이 증가하는 경향을 보였다(Fig. 4A). ALDH 활성은 대조군의 100.00%와 비교하여 CJL 500, 1,000, 2,000 및 3,000 μg/mL 농도에서 각각 104.19, 127.31, 164.07 및 178.04%로 증가하였으며, ADH와 유사하게 농도 의존적인 경향을 나타냈다(Fig. 4B). ADH에 의한 ethanol의 산화와 ALDH에 의한 acetaldehyde의 제거는 연속적으로 이루어지는 반응이므로, CJL이 두 효소의 활성을 함께 증가시킨 결과는 알코올 대사 관련 효소 반응을 보조할 가능성을 보여준다.
선행연구에 따르면 엉겅퀴 에탄올 추출물은 silymarin을 비롯한 플라보노이드계 화합물을 함유하고 있으며, silymarin은 간 보호 작용과 알코올 대사 관련 효소 활성 조절에 관여할 수 있는 것으로 보고되었다(Nam 등, 2018). 또한 엉겅퀴에 함유된 것으로 알려진 arginine, aspartic acid 및 alanine 등의 아미노산은 NAD+ 재생과 NAD+/NADH 균형에 영향을 주어 ADH 활성을 증가시킬 가능성이 제시된 바 있다(Cha 등, 2009; Park 등, 2020). 따라서 본 연구에서 확인된 ADH 및 ALDH 활성 증가는 CJL에 함유된 여러 성분의 복합적인 작용과 관련되었을 가능성이 있다. 아울러 앞서 확인된 CJL의 항산화 활성은 알코올 대사 과정에서 증가하는 산화적 부담을 완화하는 데 보완적으로 기여할 수 있다.
종합하면, CJL은 시험관 내 효소 반응에서 ADH 및 ALDH 활성을 함께 증가시켜 알코올 대사 관련 효소 반응을 조절할 가능성을 나타냈다. 이러한 활성은 acetaldehyde 축적과 이에 따른 산화적 손상을 완화함으로써 ethanol 유도 간세포 손상에 대한 CJL의 보호 가능성을 보완적으로 뒷받침할 수 있다. 다만 본 연구에서는 silymarin, 아미노산 및 다른 구성 성분의 함량과 개별 기여도를 직접 평가하지 않았으며, ADH 및 ALDH 활성도 시험관 내 효소 반응 수준에서 확인하였다. 따라서 향후 동물 모델에서 ADH 및 ALDH 활성, NAD+/NADH 비율 및 간 손상 ․ 산화스트레스 지표를 함께 분석하여 CJL의 알코올 대사 조절과 간 보호 효과를 검증할 필요가 있다.
H2O2는 HepG2 세포에 직접적인 산화스트레스를 유도하는 반면, 에탄올은 대사 과정에서의 ROS 생성, 산화 ․ 환원 불균형 및 acetaldehyde 축적이 복합적으로 관여하여 간세포 손상을 유발한다(Lu 등, 2024; Tan 등, 2020). 따라서 본 연구에서는 서로 다른 기전으로 유도된 산화적 손상 조건에서 CJL의 간세포 보호 효과를 평가하기 위해 H2O2 및 에탄올 처리 HepG2 세포의 생존율과 세포 내 ROS 수준을 측정하였다.
H2O2로 유도된 세포독성에 대한 세포 생존율을 측정한 결과는 Fig. 5A에 제시하였다. H2O2 처리군의 세포 생존율은 정상 대조군의 100.00%와 비교하여 71.12%로 감소하였다. 반면, CJL 처리군에서는 농도 의존적으로 세포 생존율이 증가하는 양상을 보였으며, CJL 100 μg/mL 처리군에서는 114.35%로 나타나 양성대조군인 vitamin C 200 μM 처리군(87.75%)에 비해 우수한 세포 생존율을 나타내었다. H2O2 처리에 따른 세포 내 ROS 수준은 정상 대조군의 100.00%와 비교하여 137.34%로 증가하였다. 반면, CJL 처리군에서는 농도 의존적으로 세포 내 ROS 수준이 감소하는 경향을 보였으며, CJL 100 μg/mL 처리군에서는 105.14%로 나타나 양성대조군인 vitamin C 200 μM 처리군(110.49%)과 유사한 ROS 생성 억제 효과를 나타내었다(Fig. 5B).
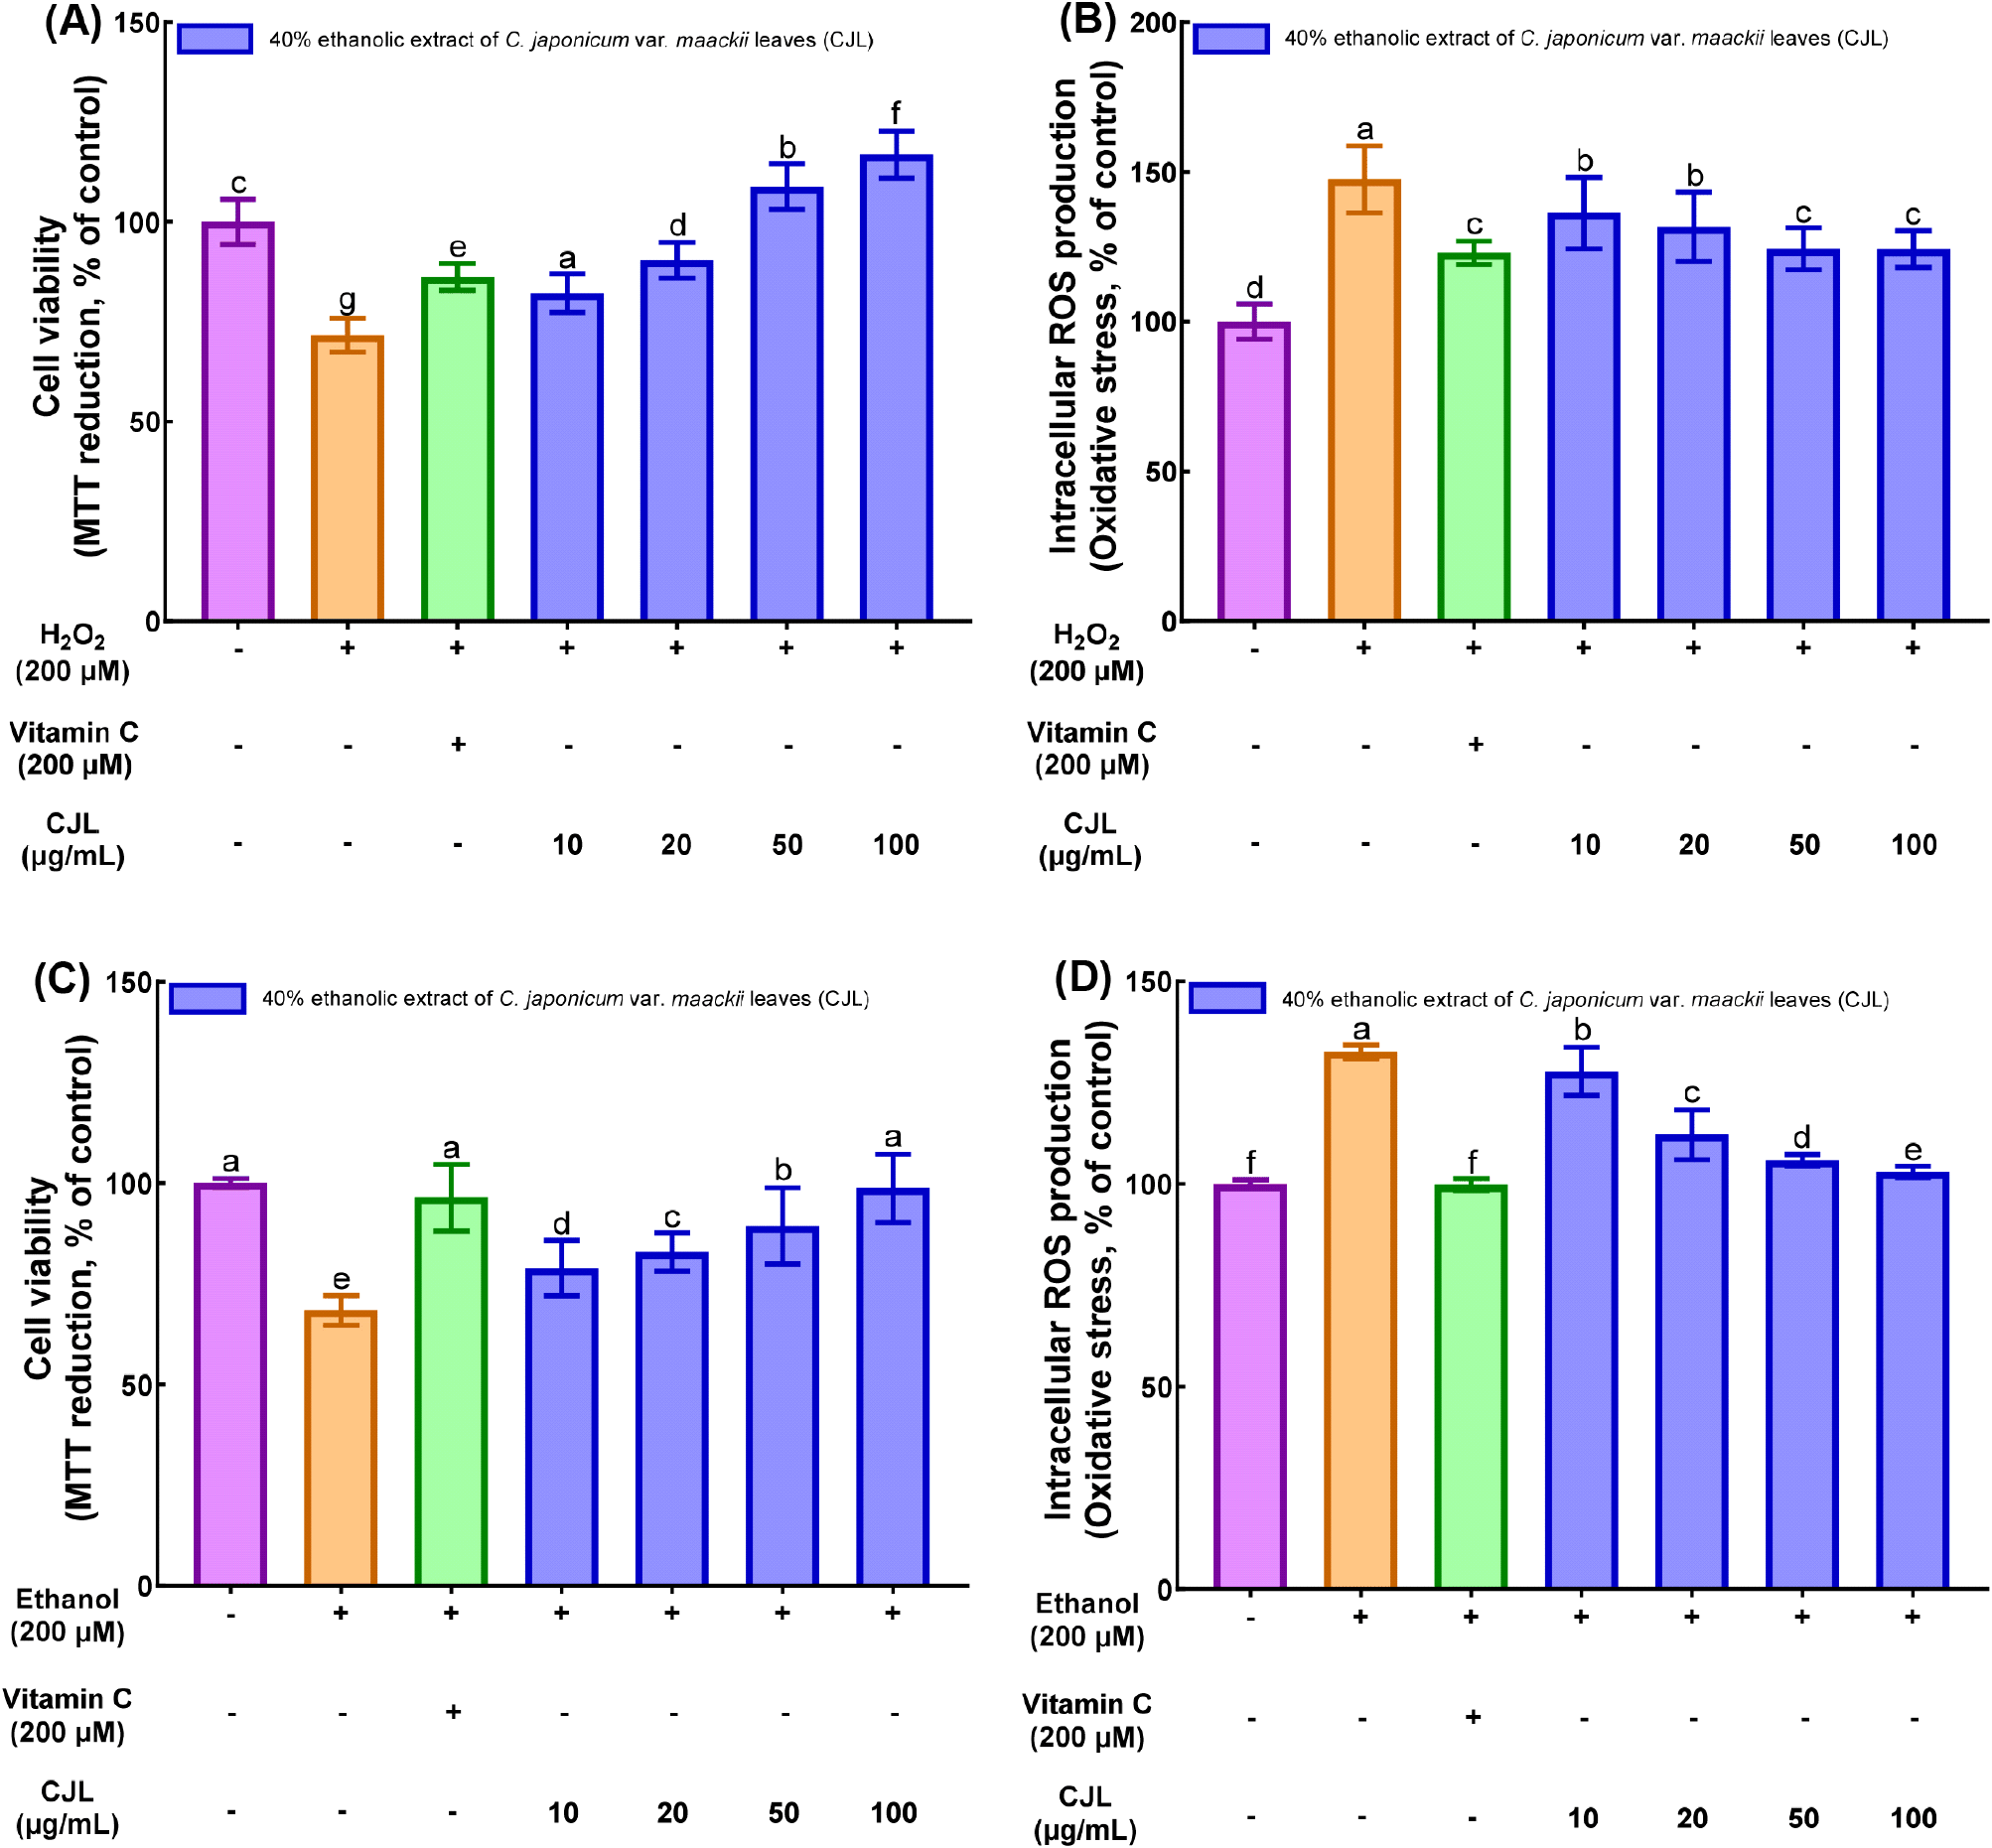
에탄올로 유도된 세포독성에 대한 세포 생존율을 측정한 결과, 에탄올 처리군의 세포 생존율은 정상 대조군의 100.00%와 비교하여 67.76%로 감소하였다. 반면, CJL 처리군에서는 농도 의존적으로 세포 생존율이 증가하는 경향을 보였으며, CJL 100 μg/mL 처리군에서는 99.36%로 나타나 양성대조군인 vitamin C 처리군(92.03%)과 유사한 세포 생존율을 나타내었다(Fig. 5C). 에탄올 처리에 따른 세포 내 ROS 수준은 정상 대조군의 100.00%와 비교하여 133.43%로 증가하였다. 반면, CJL 처리군에서는 농도 의존적으로 세포 내 ROS 수준이 감소하는 경향을 보였으며, CJL 100 μg/mL 처리군에서는 102.67%로 나타나 양성대조군인 vitamin C 처리군(102.50%)과 유사한 ROS 생성 억제 효과를 나타내었다(Fig. 5D).
이상의 결과는 CJL이 H2O2 및 에탄올로 유도된 두 세포 손상 모델에서 농도 의존적으로 세포 내 ROS 축적을 억제하고 세포 생존율을 회복시키는 효과를 나타냈음을 보여준다. 이는 CJL의 간세포 보호 효과가 직접적인 산화스트레스 조건에 국한되지 않고, 알코올 대사와 acetaldehyde 생성이 관여하는 복합적인 손상 조건에서도 나타날 수 있음을 시사한다.
간세포로 유입된 알코올은 주로 ADH, microsomal ethanol-oxidizing system (MEOS) 및 catalase를 통해 대사된다. 특히 MEOS의 주요 효소인 CYP2E1이 활성화되면 superoxide와 H2O2를 비롯한 ROS 생성이 증가하는 것으로 알려져 있다(Tan 등, 2020). 정상적인 조건에서는 생성된 ROS가 내인성 항산화 방어체계에 의해 제거되지만, 지속적인 알코올 노출은 산화스트레스를 유발할 수 있다. 이러한 산화스트레스는 지질 과산화와 미토콘드리아 기능 이상을 유도하고, 염증성 사이토카인 신호와 세포 사멸 경로를 활성화하여 간세포 손상을 악화시킬 수 있다(Tan 등, 2020). 선행연구에서 엉겅퀴 추출물은 TBHP로 산화적 손상을 유도한 HepG2 세포에서 glutathione (GSH) 수준을 조절하고 Nrf2/heme oxygenase-1 (HO-1) 항산화 방어 경로를 상향 조절하여 간세포 보호 효과를 나타내었다(Jung 등, 2017). 엉겅퀴에 함유된 페놀성 화합물 중 하나인 chlorogenic acid는 에탄올 유도 간 손상 동물 모델과 HepG2 세포에서 ROS 생성을 감소시키고 항산화 방어능을 개선하여 간세포 손상을 완화하는 것으로 보고되었다(Granado 등, 2007; Kim 등, 2018). 이러한 선행연구를 고려할 때, 본 연구에서 확인된 CJL의 세포 내 ROS 감소와 세포 생존율 회복에는 chlorogenic acid를 포함한 다양한 생리활성 성분의 항산화 작용이 복합적으로 관여했을 가능성이 있다. 특히 앞서 확인된 CJL의 라디칼 소거능, 철 환원력 및 MDA 생성 억제 활성은 H2O2 및 에탄올 처리 조건에서 나타난 세포 내 ROS 감소와 세포 생존율 증가를 뒷받침하는 항산화 특성으로 볼 수 있다. 뿐만 아니라, CJL이 알코올 대사 과정에서 형성되는 산화적 환경에서 ROS 부담을 낮추거나, Nrf2/HO-1과 같은 내인성 항산화 방어체계의 조절에 관여했을 가능성도 고려할 수 있다.
종합하면, CJL은 H2O2 및 에탄올 처리 HepG2 세포에서 증가한 ROS 수준을 감소시키고 세포 생존율을 회복시켜, 직접적인 산화스트레스 및 알코올 대사 관련 산화적 손상에 대한 간세포 보호 가능성을 나타냈다. 이러한 효과에는 CJL의 직접적인 라디칼 소거 및 지질 과산화 억제 활성과 함께 내인성 항산화 방어체계의 조절이 복합적으로 관여했을 가능성이 있다. 다만 본 연구에서는 CYP2E1, GSH 및 Nrf2/HO-1과 같은 항산화 관련 지표와 NF-κB 및 염증성 사이토카인의 변화를 직접 분석하지 않았으므로, CJL의 ROS 감소와 간세포 보호 효과에 관여하는 분자적 기전을 추가 검증할 필요가 있다.
4. 요약
본 연구는 엉겅퀴 잎 에탄올 40% 추출물(CJL)의 항산화 활성 및 알코올 유도 간세포에서의 보호 효과를 평가하고자 수행되었다. CJL의 총페놀 함량과 총플라보노이드 함량은 각각 68.58 ± 0.90 mg GAE/g extract와 47.30 ± 2.78 mg RE/g extract로 나타났으며, HPLC 분석 결과 폴리페놀인 chlorogenic acid가 27.36 μg/mg dry weight 함유되어 있음을 확인하였다. CJL은 ABTS 및 DPPH 라디칼 소거능, 철 환원력 및 간 균질액에서의 MDA 생성 억제 활성에서 항산화 활성을 나타내, chlorogenic acid를 비롯한 다양한 페놀성 화합물이 산화적 손상 완화에 복합적으로 기여했을 가능성을 보여준다. 또한, CJL은 α-glucosidase 억제 활성, AGEs 생성 억제 효과, ADH 및 ALDH 활성을 나타내 당 대사 및 알코올 대사 관련 산화스트레스 완화에 도움을 줄 가능성이 있다. CJL은 HepG2 세포에서 H2O2 및 에탄올로 유도된 세포 내 ROS를 감소시키고 세포 생존율을 회복시켰다. 이는 CJL이 산화스트레스로 인한 간세포 손상을 완화할 수 있음을 보여주며, CJL의 항산화 활성과 알코올 대사 관련 활성이 이러한 보호 효과에 일부 기여했을 가능성을 시사한다. 그러나 본 연구는 CJL에 함유된 성분 중 chlorogenic acid만을 정량하였으며, 간세포 보호 효과와 관련된 분자적 기전을 규명하지 못하였다는 한계가 있다. 그럼에도 기존에 개별적으로 보고되던 엉겅퀴 추출물의 항산화 ․ 항당뇨 ․ 간 보호 활성을 동일 추출물에서 통합적으로 평가하고, 이를 서로 다른 손상 요인으로 유도된 HepG2 세포 보호 효과와 연계하였다는 점에서 의의가 있다. 이러한 결과는 향후 알코올성 간질환의 예방 및 관리를 위한 천연물 유래 기능성 소재 개발의 기초자료로 활용될 수 있을 것이다.


