
1. 서론
2015년 국내 알코올 관련 질환 사망자 수는 4,746명으로 전년 대비 5.8% 증가하였으며, 이 가운데 알코올성 간질환 사망자는 3,748명으로 전체의 82.4%를 차지한 것으로 보고되었다(Jang과 Kim, 2018). 지속적인 술의 섭취는 만성적인 음주 습관으로 이어져 지방간, 간경변증 및 간암의 발생 위험을 증가시키는 주요 위험인자로 작용하며(Manzo-Avalos와 Saavedra-Molina, 2010), 특히 알코올성 간질환 발병 후, 3년 이내에 간경변증으로 진행될 위험이 23.3%에 이르는 것으로 보고되었다(Yoo 등, 2024). 체내에 섭취된 알코올은 위와 소장에서 흡수된 후, 간문맥을 통해 간으로 이동하며, 90% 이상이 간에서 대사된다(Lai 등, 2024). 이후, 알코올은 간세포의 세포질에 존재하는 알코올 탈수소효소(alcohol dehydrogenase, ADH)에 의해 산화되며, 이 과정에서 nicotinamide adenine dinucleotide (NAD+)가 NADH로 환원되면서 아세트알데하이드로 전환된다(Contreras-Zentella 등, 2022). 생성된 아세트알데하이드는 간 내 미토콘드리아에 존재하는 아세트알데하이드 탈수소효소(acetaldehyde dehydrogenase, ALDH)에 의해 다시 산화되며, 이 과정에서 NAD+가 NADH로 환원되면서 무독성의 acetate로 전환된다(Contreras-Zentella 등, 2022). 또한, 알코올은 ADH 경로 외에도 미소체 에탄올 산화계(microsomal ethanol-oxidizing system, MEOS) 및 catalase (CAT) 경로를 통해 대사되며(Zakhari, 2006), 특히 과량 또는 만성 음주 시 유도되는 MEOS의 핵심 효소인 cytochrome P450 2E1 (CYP2E1) 매개 대사는 아세트알데하이드 생성과 함께 활성산소종(reactive oxygen species, ROS) 생성을 증가시켜 산화 스트레스를 유발하는 것으로 보고되었다(Lai 등, 2024). 이러한 산화적 알코올 대사는 NAD+의 환원을 촉진하여, NADH 생성을 증가시키고, 간 내 NADH/NAD+ 비율을 상승시킨다(Gao와 Bataller, 2011). NAD+는 미토콘드리아 내 지방산 β-산화 과정에서 필수적인 전자수용체로 작용하므로, NADH/NAD+ 비율의 증가는 지방산 산화를 억제하고 간 내 지질 축적을 촉진하는 것으로 알려져 있다(Gao와 Bataller, 2011). 한편, 알코올 대사 과정에서 생성되는 아세트알데하이드는 1급 발암물질로 분류되는 독성 대사산물로서 간세포에 직접적인 손상을 유발하며, 세포 내 단백질 및 DNA와 공유 결합하여 acetaldehyde-protein adducts 및 DNA adducts를 형성함으로써 단백질 구조 변형과 효소 활성 저해를 초래한다(Ramadori 등, 2017). 이러한 변화는 미토콘드리아의 구조적 및 기능적 손상으로 이어져 ROS 생성 증가와 adenosine triphosphate (ATP) 생성 감소를 유발하고, 미토콘드리아 내 ALDH 활성 저하를 포함한 전반적인 기능 장애를 초래하는 것으로 보고되었다(Manzo-Avalos와 Saavedra-Molina, 2010). 이와 더불어, 알코올 대사 과정에서 생성되는 ROS는 간 손상의 주요 병인 인자로 작용한다(Ramadori 등, 2017). 특히 CYP2E1은 NADPH를 전자공여체로 이용하는 시토크롬 P450 계열의 산화 효소로서, 분자 산소를 활성화하여 기질의 산화를 촉매한다(Contreras-Zentella 등, 2022). 그러나 촉매 과정 중 전자의 일부가 기질 산화 반응에 사용되지 않고 산소로 직접 전달될 경우, superoxide (O2•⁻) 및 hydrogen peroxide (H2O2)와 같은 ROS를 생성하는 것으로 보고되었다(Contreras-Zentella 등, 2022). 또한 알코올 대사 과정에서 NAD+가 환원되어 증가한 NADH는 미토콘드리아 전자전달계에서 전자 전달의 불균형을 초래하여 ROS 생성을 촉진하며(Zakhari, 2006), 과도하게 생성된 ROS는 항산화 방어체계를 초과하여 산화 스트레스를 유발하고, 단백질, 지질 및 DNA 등 주요 세포 구성 요소에 손상을 입혀 궁극적으로 미토콘드리아 기능 저하 및 구조적 손상을 초래한다(Lai 등, 2024). 한편, 간은 간세포가 서서히 손상되어 기능의 상당 부분이 저하되더라도 초기에는 뚜렷한 임상 증상이 나타나지 않는 경우가 많아 조기 예측 및 진단이 어려우므로 예방의 중요성이 강조된다(Battle, 2025). 이에 따라, 간 손상을 완화하고 산화 스트레스를 억제할 수 있는 건강 지향 식품에 대한 연구가 활발히 진행되고 있다(Kim 등, 2016; Lee 등, 2023).
감(Diospyros kaki Thunb.)은 감나무과에 속하는 낙엽성 과수로, 우리나라를 비롯한 중국과 일본 등 동아시아 지역에서 널리 재배되는 대표적인 과일이다(Yoo 등, 2019). 감 열매는 폴리페놀, 플라보노이드 및 탄닌과 같은 다양한 생리활성 성분을 함유하고 있어 항산화 및 항염증 효과를 나타내는 것으로 보고되었다(Yaqub 등, 2016). 선행연구에 따르면 감 유래 폴리페놀은 알코올 대사의 독성 중간체인 아세트알데하이드를 제거함으로써 아세트알데하이드에 의해 유발되는 DNA 손상을 완화하는 것으로 보고되었으며(Matsuzaki 등, 2022), 이는 감이 알코올로 인한 독성 및 간 손상을 완화할 수 있는 기능성 소재로서의 가능성을 시사한다. 한편, 만성 에탄올 섭취로 유도되는 간 손상에 대한 보호 효과와 관련하여 칡이나 헛개나무를 비롯한 약용 식물 추출물의 효능은 비교적 활발히 연구되어 왔다(Niiya 등, 2024; Wang 등, 2016). 반면, 감 유래 소재의 경우, 감꼭지 메탄올 추출물이 에탄올 유도 HepG2 세포 모델에서 보호 효과를 나타낸다는 연구가 보고된 바 있으나(Hong 등, 2021), 이는 특정 부위 추출물을 대상으로 한 세포 수준(in vitro) 평가에 초점이 맞춰져 있다. 따라서 감 유래 소재를 활용한 마우스 모델 기반의 알코올 대사 및 간 보호 효과에 대한 통합적인 평가는 상대적으로 제한적인 실정이다. Pectinase 처리는 감을 포함한 과실 유래 소재의 페놀성 화합물 조성 및 항산화 활성에 영향을 줄 수 있는 가공 방법으로 보고되어 있다(Chen 등, 2023). Liu 등(2018)은 감 와인 제조 과정에서 pectinase를 처리한 결과, 주요 페놀성 화합물과 항산화 활성이 증가하였으며, HPLC 분석을 통해 phenolic profile의 변화를 확인하였다고 보고하였다. 이러한 선행연구는 pectinase 처리가 감 유래 소재의 개별 성분 조성 또는 용출 특성에 영향을 줄 수 있음을 시사한다. 이에 본 연구에서는 단감 과육 물 추출물(persimmon flesh, PF), 단감 과육 효소처리 추출물(enzyme-treated persimmon flesh, EPF), 단감 과피 물 추출물(persimmon peel, PP) 및 단감 과피 효소처리 추출물(enzyme-treated persimmon peel, EPP)의 항산화 활성, 알코올 대사 관련 효소 활성을 in vitro 수준에서 종합적으로 평가하였다. 이후 ALDH 활성 평가를 통해 단감 과육 기반 물 추출물(PF 및 EPF)을 1차 후보 소재로 선정하였으며, HepG2 세포 보호 효과 및 급성 에탄올 유도 마우스 모델 결과를 종합하여 EPF를 최종 후보 소재로 선정하였다. 나아가, 최종 선정된 EPF를 대상으로 만성 에탄올 유도 마우스 모델을 적용하여 에탄올 섭취로 유도된 간 손상에 대한 보호 효과를 평가하고자 하였다.
2. 재료 및 방법
본 연구에 사용된 시약으로 Folin-Ciocalteu’s phenol reagent, sodium carbonate, polyvinylpolypyrrolidone (PVPP), gallic acid, tannic acid, 2,2’-azino-bis(3-ethylbenzothiazoline-6-sulfonic acid) (ABTS), sodium chloride, potassium phosphate, potassium persulfate, 1,1-diphenyl-2-picrylhydrazyl (DPPH), methanol (MeOH), ascorbic acid, β-nicotinamide adenine dinucleotide (NAD), ethanol, tris base, ADH, acetaldehyde, 2-mercaptoethanol, potassium chloride (KCl), ALDH, penicillin, streptomycin, minimum essential medium (MEM), dichlorodihydrofluorescein diacetate (DCF-DA), 3-(4,5-dimethyl-thiazol-2-yl)-2,5-diphenyltetrazolium bromide (MTT), dimethyl sulfoxide (DMSO), formalin, Oil Red O solution, mannitol, sucrose, bovine serum albumin (BSA), HEPES, digitonin, ethylene glycol-bis (β-aminoethyl ether)-N,N,N’,N’-tetraacetic acid (EGTA), bradford reagent, potassium dihydrogen phosphate, malate, pyruvate, 5,5’,6,6’-Tetrachloro-1,1’,3,3’-tetraethylbenzimidazolylcarbocyanine iodide (JC-1)는 Sigma-Aldrich Chemical Co. (St. Louis, MO, USA)에서 구입하였다. ethanol assay kit 및 acetaldehyde assay kit는 Megazyme (Bray, Wicklow, Ireland)에서 구입하였으며, ATP bioluminescence assay kit는 Promega (ENLITEN® ATP assay system, Madison, WI, USA)에서 구입하였다. 또한, aspartate aminotransferase (AST), alanine aminotransferase (ALT), alkaline phosphatase (ALP), γ-glutamyl transferase (GGT) DRI-CHEM SLIDE는 FUJIFILM Corporation (Tokyo, Japan)에서 구입하였다. 그 외 사용된 용매 및 시약은 모두 1급 이상의 등급을 사용하였다.
본 연구에서 사용된 PF, EPF, PP 및 EPP는 경상남도 창원시 마산회원구 내서읍에 위치한 가고파힐링푸드 농업회사법인(주)으로부터 제공받아 사용하였다. 제공받은 추출물의 제조 공정은 다음과 같다. 부유 품종의 단감(Diospyros kaki Thunb. cv. Fuyu)을 과육과 과피를 각각 분리하여 원료로 사용하였으며, 원료 100 g에 정제수 1,000 mL를 첨가한 후 초음파 추출(40 kHz) 방식으로 55°C에서 5시간 동안 추출하였다.
단감 과육 및 과피 효소처리 추출물의 제조를 위하여 pectinase 활성이 1,200,000 U/g 이상인 Plantase C150P (Bision Biochem Co., Ltd., Seoul, Korea)를 사용하였다. 효소처리를 위해 Plantase C150P 1.3 g을 증류수 35 mL에 용해한 후, 단감 과육 추출물 650 g 또는 과피 추출물 650 g에 첨가하여 균일하게 혼합하였다. 이후 50°C로 유지된 인큐베이터에서 3시간 동안 혐기적 조건 하에 반응시켰다. 효소처리 공정의 재현성을 확보하기 위해 효소 종류, 효소 첨가량, 반응 온도, 반응 시간 및 반응 조건을 모든 제조 과정에서 동일하게 유지하였다. 반응이 완료된 추출액은 진공농축기(N-N series, Eyela Co, Tokyo, Japan)를 이용하여 농축한 후, 동결건조기(FDU-8612, Operon Co, Ltd, Gimpo, Korea)를 사용하여 동결건조하였다. 건조된 시료는 −20°C에서 보관하며 실험에 사용하였다.
총페놀성 화합물 함량을 측정하기 위해 시료 추출액 1 mL에 3차 증류수 9 mL를 가하여 혼합한 후, Folin-Ciocalteu’s phenol reagent 1 mL를 첨가하여 실온에서 5분간 반응시켰다. 이후, 7% Na2CO3 용액 10 mL를 추가로 혼합하고, 3차 증류수를 이용하여 최종 부피를 25 mL로 정용한 뒤, 23°C에서 2시간 동안 반응시켰다. 반응 후, 760 nm에서 흡광도(UV-1800, Shimadzu, Tokyo, Japan)를 측정하였으며, gallic acid 표준곡선을 이용하여 총페놀성 화합물 함량을 산출하였다.
총탄닌 함량을 측정하기 위해 PVPP를 증류수에 용해한 후, 시료 0.5 mL와 혼합하였다. 이후, 혼합액을 3,000 ×g에서 10분간, 4°C 조건으로 원심분리한 뒤, 상등액을 취하여 총페놀성 화합물 함량 측정과 동일한 방법으로 분석하였다. 이후, tannic acid 표준곡선을 이용하여 총탄닌 함량을 산출하였으며, 결과는 tannic acid equivalents (mg TAE/g)로 환산하여 나타내었다.
ABTS 라디칼 소거 활성을 평가하기 위해 7 mM ABTS와 2.45 mM potassium persulfate를 150 mM sodium chloride가 포함된 100 mM potassium phosphate buffer (pH 7.4)에 용해하여 혼합한 후, 68°C로 설정된 water bath에서 반응시켜 ABTS 라디칼 용액을 제조하였다. 제조된 ABTS 라디칼 용액은 실온에서 냉각하여 0.45 μm 필터로 여과한 후, 24시간 동안 4°C에서 보관하였다. 이후, 흡광도가 734 nm에서 0.70 ± 0.02가 되도록 희석하여 ABTS 반응용액을 조제하고, 시료용액 20 μL를 첨가하여 혼합한 후, 37°C에서 10분간 반응시킨 다음, 흡광도(UV-1601, Shimadzu)를 734 nm에서 측정하였다.
DPPH 라디칼 소거 활성을 평가하기 위해 80% MeOH에 0.1 mM DPPH를 용해하여 517 nm에서 흡광도가 1.00 ± 0.02가 되도록 조정한 후, DPPH 용액 1,450 μL와 시료용액 50 μL 를 혼합하여 빛을 차단한 상태에서 30분간 반응시켰다. 이후, 흡광도(UV-1601, Shimadzu)를 517 nm에서 측정하였다.
ADH (alcohol dehydrogenase from saccharomyces cerevisiae, Sigma-Aldrich Chemical Co.)효소 활성을 측정하기 위해 시료 50 μL에 20 mM NAD 100 μL, 증류수 400 μL, 1 M tris buffer (pH 8.8) 300 μL 및 0.2 M ethanol 100 μL를 혼합한 후, 25°C에서 10분간 반응시켰다. 이후, 반응액에 5 units/mL ADH 50 μL를 첨가한 뒤, 340 nm에서 흡광도(Epoch 2, BioTek Instruments, Winooski, VT, USA)를 측정하였다.
ALDH (aldehyde dehydrogenase, potassium-activated from yeast, Sigma-Aldrich Chemical Co.)효소 활성을 측정하기 위해 시료 30 μL에 20 mM NAD 200 μL, 증류수 400 μL, 1 M tris buffer (pH 8.0) 80 μL, 0.1 M acetaldehyde 20 μL, 3 M KCl 20 μL, 0.33 M 2-mercaptoethanol 20 μL를 혼합한 후, 25°C에서 10분간 반응시켰다. 이후, 반응액에 1 units/mL ALDH 50 μL를 첨가하여 반응시킨 뒤, 340 nm에서 흡광도(Epoch 2, BioTek Instruments)를 측정하였다.
본 연구에서는 인간 간 조직에서 유래된 HepG2 세포주를 사용하였으며, 한국세포주은행(Korean Cell Line Bank, KCLB-88065, Seoul, Korea)에서 분양받았다. HepG2 세포는 10% FBS와 50 units/mL penicillin 및 100 μg/mL streptomycin이 포함된 MEM 배지를 사용하여 37°C, 5% CO2 조건으로 배양하였다.
에탄올 처리에 따른 HepG2 세포의 생존율 변화를 평가하기 위해 MTT assay를 실시하였다. 세포는 96-well plate에 1 × 10⁴ cells/well이 되도록 분주한 후, 37°C, 5% CO2 조건에서 24시간 동안 배양하였다. 배양 후, 시료를 30 μL 처리하였으며, 에탄올 처리군의 경우 시료 처리 3시간 후, 최종 농도 500 mM이 되도록 에탄올을 10 μL 처리하여 24시간 반응시켰다. 이후, 10 μM MTT 용액 10 μL를 각 well에 첨가하고 37°C, 5% CO2 조건에서 3시간 동안 반응시켜 미토콘드리아 효소 활성에 의해 formazan이 형성되도록 하였다. 이후, DMSO를 첨가하여 생성된 formazan을 용해시킨 후, 570 nm를 측정 파장으로 하고 655 nm를 기준 파장으로 설정하여 마이크로플레이트 리더기(Epoch 2, BioTek Instruments)를 이용해 흡광도를 측정하였다. 측정된 세포 생존율은 대조군을 기준으로 백분율(%)로 환산하여 나타내었다.
HepG2 세포에서 에탄올 처리에 따른 세포 내 산화 스트레스 수준을 확인하기 위해 DCF-DA assay를 실시하였다. 세포는 96-well black plate에 1 × 10⁴ cells/well이 되도록 분주하였다. 이후, 37°C, 5% CO2 조건에서 24시간 배양 후, 시료를 40 μL를 처리하였으며, 에탄올 처리군의 경우 시료 처리 3시간 후, 최종 농도 500 mM이 되도록 에탄올을 20 μL 처리하여 24시간 동안 방치시켰다. 이후, 50 μM DCF-DA 용액 40 μL를 각 well에 첨가하고 37°C, 5% CO2 조건에서 50분간 반응시켰다. 이후, 여기 파장 485 nm와 방출 파장 535 nm에서 형광광도계(Infinite F200, Tecan, Mannedorf, Switzerland)를 이용하여 형광 강도를 측정하였다. 측정된 형광 강도는 대조군을 기준으로 백분율(%)로 환산하여 산화 스트레스 생성 수준을 평가하였다. 본 연구에서 MTT 및 DCF-DA assay에 적용한 500 mM ethanol 농도는 HepG2 세포에서 단기간 내 산화 스트레스 및 세포 손상을 유도하기 위한 급성 손상 조건으로 설정하였다(Xu 등, 2022). 또한 세포 배양 중 ethanol 휘발에 따른 농도 변화를 최소화하기 위해 ethanol 처리 직후 plate를 sealing film으로 밀봉하였으며, 배양 중 plate 개방 시간을 최소화하였다(Xu 등, 2022).
HepG2 세포에서 에탄올 처리로 유도된 세포 내 지질 축적 억제 효과를 평가하기 위해 Oil Red O 염색법을 수행하였다. 세포는 24-well plate에 1 × 10⁵ cells/well이 되도록 분주한 후, 37°C, 5% CO2 조건에서 24시간 동안 배양하였다. 배양 후, 배지를 제거하고, 에탄올의 최종 농도가 150 mM이 되도록 에탄올과 시료가 첨가된 MEM 배지로 교체하여 5일간 배양하였으며, 배지는 매일 동일한 조건의 배지로 교체하였다. 배양 종료 후, PBS로 세척하고 10% formalin으로 실온에서 1시간 고정하였다. 고정 후, 증류수로 세척하여 잔여 formalin을 제거한 다음, isopropanol에 0.5% 농도로 용해한 Oil Red O 용액을 증류수와 6:4 비율로 희석하여 각 well에 처리하고 실온에서 30분간 염색하였다. 염색 후, 증류수로 세척한 뒤, 염색된 세포를 현미경(CKX41, Olympus, Tokyo, Japan)을 사용하여 접안렌즈(10×)와 대물렌즈(20×)를 이용한 총 200× 배율에서 촬영하였다. 이후, 세포 내 지질에 결합된 Oil Red O를 100% isopropanol로 용출시켜 500 nm에서 흡광도(Epoch 2, BioTek Instruments)를 측정하였다.
본 실험에 사용된 실험동물은 4주령의 C57BL/6 수컷 마우스로, 실험동물 공급업체인 Koatech (Pyeongtaek, Korea)에서 구입하였다. 실험 전 7일간의 환경 적응 기간을 거친 후, 온도 22 ± 2°C와 습도 50-55%로 유지되는 항온 · 항습 조건에서 12시간 명암 주기를 유지하며 사육하였다. 급성 에탄올 유도 마우스 모델을 이용한 숙취 해소 효능 평가에서 실험동물은 무작위 배정을 통해 5마리씩 총 4개 군으로 분류하였다. 실험군은 정상 대조군(NC, drinking water), 에탄올 투여군(Ethanol, 25% ethanol 5 g/kg of body weight), 단감 과육 추출물 100 mg/kg 투여군(PF100, PF 100 mg/kg of body weight) 및 단감 과육 효소처리 추출물 100 mg/kg 투여군(EPF100, EPF 100 mg/kg of body weight)으로 구분하였으며, 적응기간이 끝난 후, 정상 대조군을 제외한 모든 실험군에는 25% 에탄올(5 g/kg of body weight)을 단회 경구투여하였다.
만성 에탄올 유도 간 손상 마우스 모델에서 실험동물은 무작위 배정을 통해 7마리씩 총 4개 군으로 분류하였다. 실험군은 정상 대조군(NC, drinking water), 에탄올 투여군(Ethanol, 25% ethanol 5 g/kg of body weight), 단감 과육 효소처리 추출물 투여군(EPF100 및 EPF200, EPF 100 및 200 mg/kg of body weight)으로 구분하였다. 7일간의 환경 적응 기간 종료 후, 정상 대조군과 에탄올 투여군에는 식수를, 시료 투여군에는 시료를 경구 투여하였다. 이후 30분이 경과한 뒤, 정상 대조군을 제외한 모든 실험군에 25% 에탄올을 5 g/kg of body weight의 용량으로 8주간 매일 경구 투여하였다. 본 연구는 경상국립대학교 동물윤리심의위원회(Institutional Animal Care and Use Committee, IACUC)의 승인을 받아 수행하였다(경상국립대학교 동물실험 승인번호: GNU-250717-M0164, 승인일: 2025.07.17).
급성 에탄올 유도 마우스 모델의 혈중 알코올 및 아세트알데하이드 농도 측정을 위해 정상 대조군과 에탄올 투여군에는 식수를, 시료 투여군에는 각 시료를 경구투여하였다. 투여 30분 후, 정상 대조군을 제외한 모든 실험군에 25% 에탄올을 5 g/kg of body weight 용량으로 단회 경구투여하였다. 25% 에탄올 투여 후, 0분, 30분, 60분, 90분 및 120분이 경과한 시점에 실험동물의 복대 정맥에서 채혈하였으며, 채취한 혈액은 10,000 ×g에서 10분간 원심분리하여 혈청을 분리하였다. 분리된 혈청 내 알코올 및 아세트알데하이드 농도 측정은 ethanol assay kit와 acetaldehyde assay kit를 사용하여 마이크로플레이트 리더기(Epoch 2, BioTek Instruments)를 이용하여 340 nm에서 흡광도를 측정하였다.
혈중 알코올 및 아세트알데하이드 농도의 시간에 따른 변화를 정량적으로 비교하기 위해 0-120분 동안의 농도-시간 곡선의 면적(area under the curve, AUC)을 선형 사다리꼴법(linear trapezoidal method)을 이용하여 산출하였다. 각 구간의 AUC는 인접한 두 측정 시점의 농도값을 더한 후 2로 나누고, 여기에 해당 시간 간격을 곱하여 계산하였으며, 전체 AUC는 각 구간 AUC의 합으로 산출하였다.
실험동물의 체중은 실험 기간 동안 주 1회 일정한 시간에 측정하여 체중 변화를 확인하였다. 실험 종료 후 마우스를 12시간 절식시킨 뒤 간을 적출하여 무게를 측정하였다. 간 중량은 각 마우스의 체중 차이를 보정하기 위해 최종 체중에 대한 상대 간 중량(% body weight)으로 환산하였다.
8주간 에탄올 식이 투여가 종료된 후, 실험동물의 복대정맥에서 혈액을 채취하였다. 채취한 혈액은 10,000 ×g에서 10분간 원심분리하여 혈청을 분리한 후, 혈청 중에 존재하는 AST, ALT, ALP 및 GGT의 활성을 혈청 자동 분석기(DRI-CHEM 4000i, FUJIFILM, Tokyo, Japan)를 이용하여 측정하였다.
미토콘드리아 추출은 마우스 간 조직을 5배 부피의 1 mM EGTA를 함유하는 미토콘드리아 분리(mitochondria isolation, MI) 완충액 [215 mM mannitol, 75 mM sucrose, 0.1% BSA, 20 mM HEPES (pH 7.2)]에 현탁한 뒤, 균질화하여 수행하였다. 균질액에서 깨지지 않은 세포와 핵을 제거하기 위해 1,300 ×g에서 5분간 4°C 조건으로 원심분리한 후, 상등액을 회수하여 13,000 ×g에서 10분간 4°C 조건으로 원심분리하였다. 이후, synaptosome 제거를 위해 상등액을 제거하고 남은 미토콘드리아 pellet을 0.1% digitonin을 포함하는 MI 완충액과 혼합하여 5분간 반응시켰다. 반응 후, 혼합용액에 1 mM EGTA를 포함한 MI 완충액을 첨가한 뒤, 13,000 ×g에서 15분간 4°C 조건으로 원심분리하였으며, 상등액을 제거하고 남은 pellet을 MI 완충액으로 재현탁하여 10,000 ×g에서 10분간 4°C 조건으로 원심분리하였다. 이후, 상등액을 제거한 최종 pellet을 MI 완충액에 현탁하였으며, 단백질 농도는 Bradford assay를 이용하여 측정하였다.
미토콘드리아에서의 ROS 생성 수준은 미토콘드리아 추출물을 KCl-based respiration buffer (125 mM KCl, 2 mM potassium dihydrogen phosphate, 20 mM HEPES, 1 mM magnesium chloride, 0.5 mM EGTA, 2.5 mM malate 및 5 mM pyruvate)와 혼합한 뒤, 25 μM DCF-DA를 첨가하여 20분간 반응시켰다. 이후, 여기 파장 485 nm와 방출 파장 535 nm에서 형광광도계(Infinite F200, Tecan)를 사용하여 형광 강도를 측정하였다.
미토콘드리아 막전위(mitochondrial membrane potential, MMP)는 분리된 미토콘드리아 추출물을 5 mM pyruvate와 5 mM malate가 혼합된 MI 완충액에 현탁한 후, 1 μM JC-1을 첨가하여 교반하였다. 이후, 반응용액을 암실에서 20분간 방치한 뒤, 형광광도계(Infinite F200, Tecan)를 사용하여 여기 파장 530 nm 및 방출 파장 590 nm에서 형광 강도를 측정하였다. 본 분석에서는 사용된 장비의 측정 조건을 고려하여, JC-1 J-aggregate 형성에 의해 나타나는 590 nm의 red fluorescence intensity를 측정함으로써 미토콘드리아 막전위 변화를 평가하였다(Lee 등, 2023).
ATP 함량은 ATP bioluminescence assay kit를 사용하여 제조사의 protocol에 따라 측정하였다. 미토콘드리아 추출물은 luciferase에 의해 촉매되는 luciferin의 산화 반응에서 발생하는 생물발광 신호를 이용하여 정량하였으며, ATP 함량은 표준곡선을 이용하여 계산한 후, nM/mg of protein으로 나타내었다.
EPF에 포함된 유효 성분을 더욱 효율적으로 검출하기 위해 추출물을 최종 부피 300 mL로 정용한 후, 동일 부피의 ethyl acetate를 첨가하여 용매 분획을 수행하였다. 이후 분리된 ethyl acetate 층을 회수하여 감압 농축한 뒤, 동결건조를 통해 용매를 완전히 제거하였으며, 얻어진 분획물을 이후 실험에 사용하였다. EPF 분획물의 주요 생리활성 성분 정량 분석은 high performance liquid chromatography (HPLC)를 이용하여 수행하였다. 분석 장비로는 HPLC 시스템(Ultimate 3000 series, Dionex, Sunnyvale, CA, USA)을 사용하였으며, C18 (250 × 4.6 mm, 5 μm; YMC-Triart, YMC Korea, Seongnam, Korea) 컬럼을 이용하였다. 시료는 1 mg/mL 농도로 50% MeOH에 용해한 후, 0.45 μm 필터로 여과하여 분석에 사용하였다. 이동상은 0.1% formic acid가 첨가된 증류수(A)와 0.1% formic acid가 첨가된 MeOH (B) 조성비를 5-10% B (0-5 min), 10-50% B (5-35 min), 50-60% B (35-40 min), 60-90% (40-42 min), 90-5% B (42-45 min)으로 설정하여 총 45분간 분석하였다. 시료 주입량은 10 μL, 이동상의 유속은 1.0 mL/min으로 설정하였고 검출은 diode array detector (DAD)를 이용하여 254 nm에서 수행하였다. 정량분석을 위해 표준물질을 6단계 농도로 희석하여 시료와 동일한 조건에서 분석하였으며, 얻어진 피크 면적을 기반으로 검량곡선을 작성하였다. 이후 시료의 피크 면적을 해당 검량곡선에 대입하여 생리활성 물질의 함량을 계산하였다.
모든 실험 결과는 반복 실험을 통해 얻은 값을 평균 ± 표준편차(mean ± standard deviation, SD)로 나타내었다. 통계 분석에 앞서 Shapiro-Wilk test를 이용하여 정규성을 확인하였다. 이후 일원분산분석(one-way analysis of variance, ANOVA)을 실시하였으며, 사후검정으로 Duncan’s multiple range test를 수행하였다. 실험의 표본 수는 해당 figure legend에 명시하였다. 미토콘드리아 기능 분석(ROS, MMP, ATP; n = 5)의 경우 제한된 표본 수로 수행되었으므로, 해당 결과는 기능적 평가, 생화학적 지표 및 관련 분자생물학적 결과와 함께 종합적으로 해석하였다. 통계적 유의성은 p < 0.05 수준에서 검증하였으며, 통계 분석에는 SAS 소프트웨어(version 9.4, SAS Institute Inc., Cary, NC, USA)를 이용하였다.
3. 결과 및 고찰
PF, EPF, PP 및 EPP의 항산화 활성은 총페놀성 화합물 함량, 총탄닌 함량 및 ABTS, DPPH 라디칼 소거 활성을 측정하여 평가하였다(Table 1). 총페놀성 화합물 함량 측정 결과, PF와 EPF의 페놀 함량은 각각 64.97 및 64.56 mg GAE/g으로 두 실험군 간에 유의적인 차이를 나타내지 않았다. 반면, PP와 EPP의 총페놀성 화합물 함량은 각각 72.54 및 83.72 mg GAE/g으로 유의적인 차이를 나타내었다. 총탄닌 함량 측정 결과, PF와 EPF는 각각 58.98 및 53.98 mg TAE/g으로 두 실험군 간에 유의적인 차이를 나타내지 않았으나, PP와 EPP의 총탄닌 함량은 각각 43.98 및 22.32 mg TAE/g으로 유의적인 차이를 나타내었다. ABTS 라디칼 소거 활성 분석 결과, 양성 대조군으로 사용한 vitamin C의 IC50은 0.0529 mg/mL로 나타났으며, PF, EPF, PP 및 EPP의 IC50은 각각 53.55, 54.31, 56.26, 및 52.64 mg/mL로 확인되었다. DPPH 라디칼 소거 활성 분석 결과, 양성 대조군으로 사용한 vitamin C의 IC50은 0.109 mg/mL로 나타났으며, PF, EPF, PP 및 EPP의 IC50은 각각 59.15, 56.19, 130.94 및 263.38 mg/mL로 확인되었다. 종합적으로, 총페놀성 화합물 함량은 EPP에서 가장 높게 나타났으며, ABTS 라디칼 소거 활성 또한 EPP에서 가장 낮은 IC50 경향을 보여 다른 시료에 비해 높은 활성을 나타내었다. 반면, 총탄닌 함량은 단감 과육 유래 물 추출물(PF 및 EPF)에서 상대적으로 높게 나타났고, 과피에서는 효소처리 후 감소하는 양상을 보였다. DPPH 라디칼 소거 활성은 과육 유래 물 추출물(PF 및 EPF)에서 과피 시료보다 낮은 IC50 값을 나타내어 상대적으로 높은 활성을 보였다.
Results of TPC and TTC are presented as mg of GAE/g and mg of TAE/g, respectively, and results of ABTS and DPPH are presented as IC50 value (mg/mL). All values are mean ± SD (n = 3). Means with different superscript letters (a–d) in the same column are significantly different at p < 0.05 by Duncan’s multiple range test.
감에는 폴리페놀, 플라보노이드 및 탄닌을 포함한 다양한 페놀성 화합물이 함유되어 있으며(Direito 등, 2021), 이들은 방향족 고리에 결합된 수산기(−OH)를 통해 수소 원자 또는 전자를 공여함으로써 자유라디칼을 소거하고 산화 연쇄 반응을 억제하는 항산화 활성을 나타낸다(Yaqub 등, 2016). 특히 감에는 gallic acid, protocatechuic acid catechin 및 epicatechin과 같은 flavan-3-ol 계열 화합물이 주요 페놀성 화합물로 존재하는 것으로 보고되었으며(Yaqub 등, 2016), 이러한 성분들은 자유라디칼 소거 및 금속 이온 킬레이트화 능력을 통해 강력한 ROS 소거 활성을 나타내는 것으로 알려져 있다(Li 등, 2023). 선행연구에 따르면 감은 사과, 포도 및 토마토와 같은 다른 과일과 비교하여 높은 수준의 총페놀성 화합물 함량을 나타내는 것으로 보고된 바 있어(Direito 등, 2021; Gorinstein 등, 2001), 감이 항산화 소재로 활용될 수 있음을 시사한다. 또한, 다양한 과일류에서 일반적으로 과피 부위가 과육 부위보다 상대적으로 높은 페놀성 화합물 함량을 나타내는 것으로 보고되었으며(Li 등, 2011), Jo 등(2010)의 연구에서도 감의 과피가 과육보다 높은 페놀 함량을 나타내는 것으로 확인되어 본 연구 결과와 일치하는 경향을 보였다. 한편, 탄닌은 감의 대표적인 페놀성 화합물로서 ABTS 및 DPPH 자유라디칼 소거 활성과 유의적인 상관관계를 나타내는 것으로 보고되었다(Li 등, 2011). 선행연구에 따르면 감에서 분리한 탄닌은 라디칼 소거 분석에서 농도 의존적으로 항산화 활성이 증가하는 것으로 보고되어, 탄닌이 항산화 활성과 밀접한 연관이 있음을 시사한다(Shin 등, 2014). 본 연구에서 단감 시료를 대상으로 수행한 DPPH 라디칼 소거 활성 결과, 총탄닌 함량이 높은 시료에서 상대적으로 우수한 DPPH 라디칼 소거 활성이 관찰되었다. 이러한 결과는 단감의 항산화 활성에 있어 탄닌 성분 등이 기여했을 가능성을 시사한다.
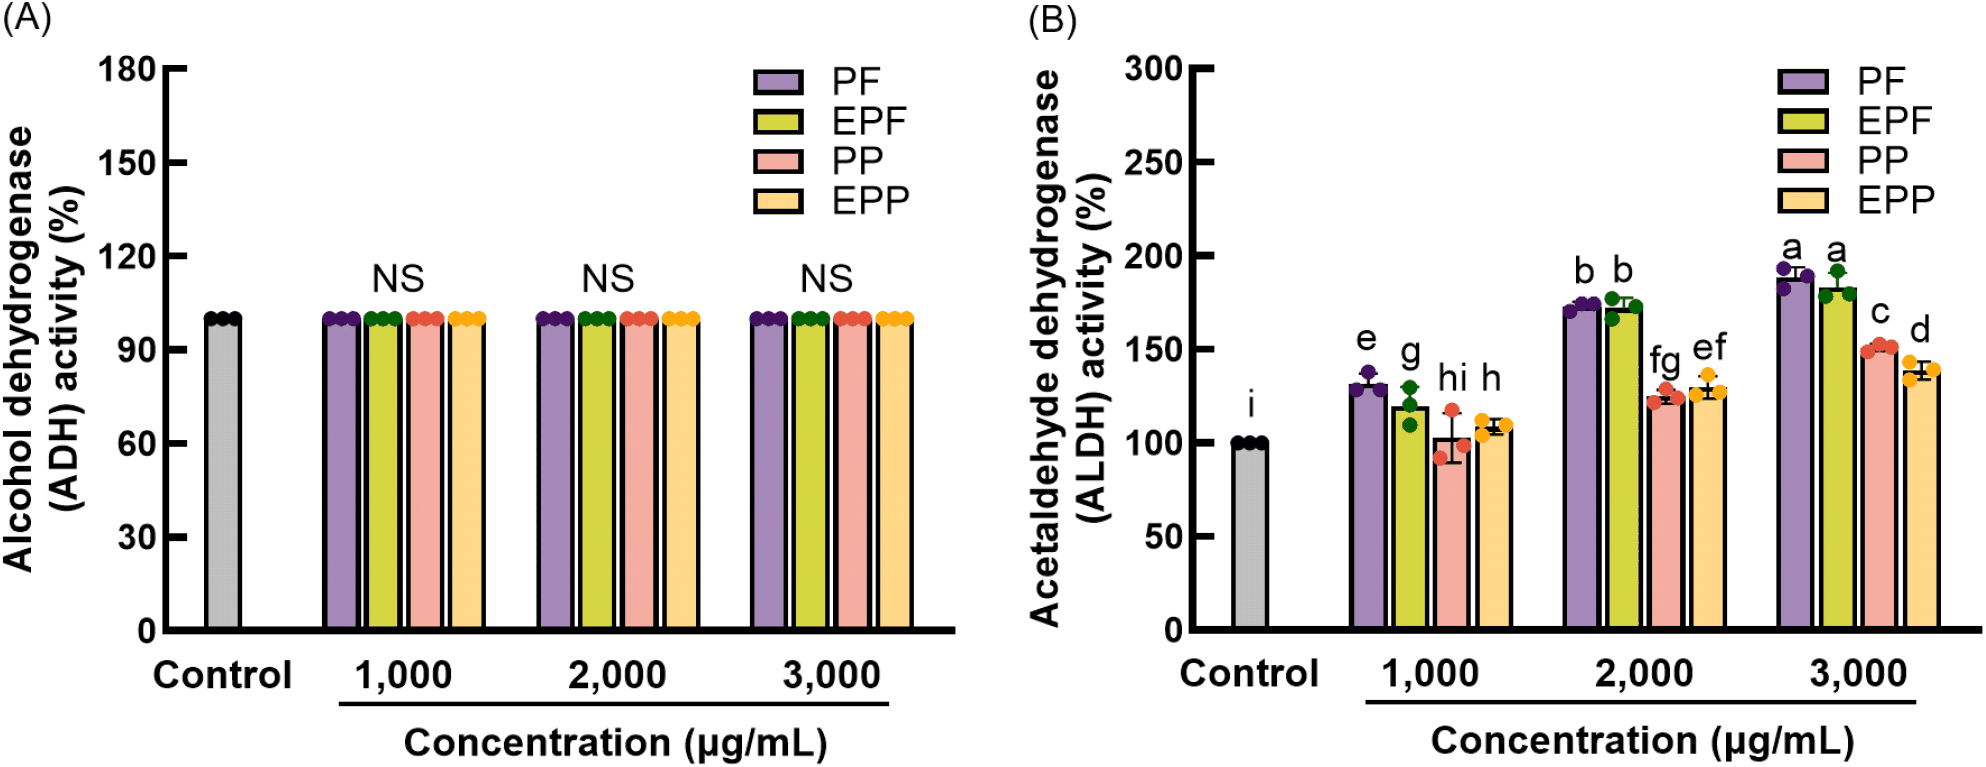
단감 시료의 ADH 활성 측정 결과(Fig. 1A), PF, EPF, PP 및 EPP는 모든 처리 농도(1,000-3,000 μg/mL)에서 대조군(100%)과 비교하여 유의적인 차이를 나타내지 않았다. ALDH 활성 측정 결과(Fig. 1B), 1,000 μg/mL 처리 농도에서 PF, EPF, PP 및 EPP는 각각 131.53%, 119.82%, 102.70% 및 108.56%의 활성을 나타내었다. 2,000 μg/mL에서는 각각 172.97%, 172.07%, 124.75% 및 129.73%, 3,000 μg/mL에서는 각각 188.29%, 183.33%, 150.90% 및 138.74%로 나타났다. 모든 시료에서 처리 농도가 증가할수록 ALDH 활성이 유의적으로 증가하는 농도 의존적 경향을 나타냈다. 특히 1,000-3,000 μg/mL 농도 범위에서 단감 과육 기반 물 추출물(PF 및 EPF)은 단감 과피 기반 물 추출물(PP 및 EPP) 대비 유의적으로 증가한 ALDH 활성을 나타내었고, 2,000-3,000 μg/mL 농도 범위에서는 PF와 EPF 간 유의적인 차이는 관찰되지 않았다. 이러한 결과는 단감 시료가 ADH 활성 증가보다는 이후 대사 단계인 ALDH 활성 조절을 통해 아세트알데하이드 대사에 관여할 가능성을 시사하며, 단감 과육 유래 물 추출물에서 확인된 ALDH 활성은 아세트알데하이드 대사 효율 개선을 위한 기능성 소재로서 산업적 활용 가능성을 뒷받침한다. 이에 따라 단감 과육 기반 물 추출물(PF 및 EPF)을 알코올성 간기능 개선을 위한 1차 후보 소재로 선정하였으며, 이후 HepG2 세포에서의 세포 보호 효과를 평가하기 위해 MTT 및 DCF-DA 분석을 수행하였다.
알코올 섭취 후, 체내에서 생성되는 아세트알데하이드는 반응성이 높은 독성 물질로서 단백질 및 DNA와 결합하여 세포 손상을 유발하고, 산화 스트레스를 증가시켜 간 기능 저하를 초래할 뿐만 아니라 숙취를 유발하는 주요 원인 물질로 알려져 있다(Ramadori 등, 2017). 숙취는 두통, 오심, 구토, 설사, 피로감 및 인지 기능 저하 등 다양한 신체적 및 신경학적 증상을 동반하며, 이러한 증상은 체내 아세트알데하이드의 축적과 밀접한 관련이 있다(Niiya 등, 2024). 따라서 아세트알데하이드를 신속하게 acetate로 전환시키는 과정은 알코올성 간 손상 및 숙취 증상의 완화에 있어 중요한 방어 기전으로 작용한다(Niiya 등, 2024). 이러한 대사 과정의 핵심 효소는 ALDH이며, ALDH 활성이 증가할수록 아세트알데하이드의 체내 축적을 효과적으로 억제하고 독성 노출 시간을 단축할 수 있다는 점에서 생리적으로 유리하게 작용한다(Lai 등, 2024). 그러나 동양인 인구의 상당수는 아세트알데하이드를 분해하는 주요 효소인 aldehyde dehydrogenase 2 (ALDH2)의 활성이 낮은 유전적 특성을 가지는 것으로 보고되어 있으며, 이에 따라 알코올 섭취 시 아세트알데하이드 축적이 증가하여 숙취 및 알코올 관련 질환에 더욱 취약한 것으로 알려져 주의가 요구된다(Yoo 등, 2024). Liu 등(2022)의 연구에 따르면, protocatechuic acid는 마우스 간세포 모델(Hepa1c1c7)에서 ALDH 활성을 농도 의존적으로 증가시키는 것으로 보고되었다. 반면, 하이드록실기를 갖지 않는 benzoic acid나 지방족 탄화수소 사슬 구조를 갖는 hexanoic acid는 ALDH 활성에 유의적인 영향을 미치지 않아, 페놀성 하이드록실기를 포함하는 구조가 ALDH 활성 증가에 핵심적으로 관여할 가능성이 시사되었다(Liu 등, 2022). 이러한 결과는 protocatechuic acid 등이 항산화 작용과 더불어 세포 내 ALDH의 활성을 증가시켜 아세트알데하이드의 대사를 촉진함으로써 알코올 대사 개선에 기여할 가능성을 시사한다. 이러한 맥락에서 감에는 protocatechuic acid가 주요 페놀성 화합물로 보고되어 있어(Yaqub 등, 2016), 본 연구에서 확인된 ALDH 활성 증가 효과를 뒷받침하는 근거가 될 수 있다.
PF와 EPF의 간세포 보호 효과는 HepG2 세포에서 에탄올로 유도된 산화 스트레스 모델을 이용하여 평가하였으며, 그 결과를 Fig. 2에 나타내었다. 에탄올을 처리하지 않은 조건에서 PF와 EPF를 단독 처리한 HepG2 세포의 생존율은 Fig. S1에 나타내었다. 에탄올로 유도된 산화 스트레스 조건에서 HepG2 세포의 생존율을 평가한 결과(Fig. 2A), 정상 대조군(100.00%) 대비 에탄올 처리군에서 44.71%로 현저하게 감소하였다. 하지만, PF의 50, 100, 200 및 500 μg/mL 처리군에서는 각각 45.33, 45.41, 49.79 및 49.89%의 세포 생존율을 나타내었으며, PF 50 및 100 μg/mL 처리군에서는 에탄올 처리군과 유의적인 차이를 나타내지 않았다. 반면, EPF는 50, 100, 200 및 500 μg/mL 처리군에서 51.12, 55.15, 61.75 및 62.73%의 세포 생존율을 보여 에탄올 처리군 대비 유의적인 회복 효과를 보였다. 특히, 모든 처리 농도에서 EPF 처리군은 PF 처리군보다 상대적으로 높은 세포 생존율을 나타내었다. 한편, HepG2 세포에서 에탄올 처리에 의해 유도된 산화 스트레스 조건에서 ROS 생성량을 평가한 결과(Fig. 2B), 에탄올 처리군은 정상 대조군(100.00%) 대비 137.30%로 유의적으로 증가한 반면, PF의 50, 100, 200 및 500 μg/mL 처리군에서는 각각 118.33%, 114.49%, 110.56% 및 109.47%로 ROS 생성이 감소하여 에탄올 처리군 대비 유의적인 억제 효과를 나타내었다. 또한 EPF는 50, 100, 200 및 500 μg/mL 처리군에서 각각 115.09%, 111.96%, 106.22% 및 105.80%로 ROS 생성이 감소하였으며, 모든 처리 농도에서 PF 처리군 대비 낮은 ROS 생성 수준을 보여 상대적으로 우수한 산화 스트레스 억제 효과를 나타내었다.
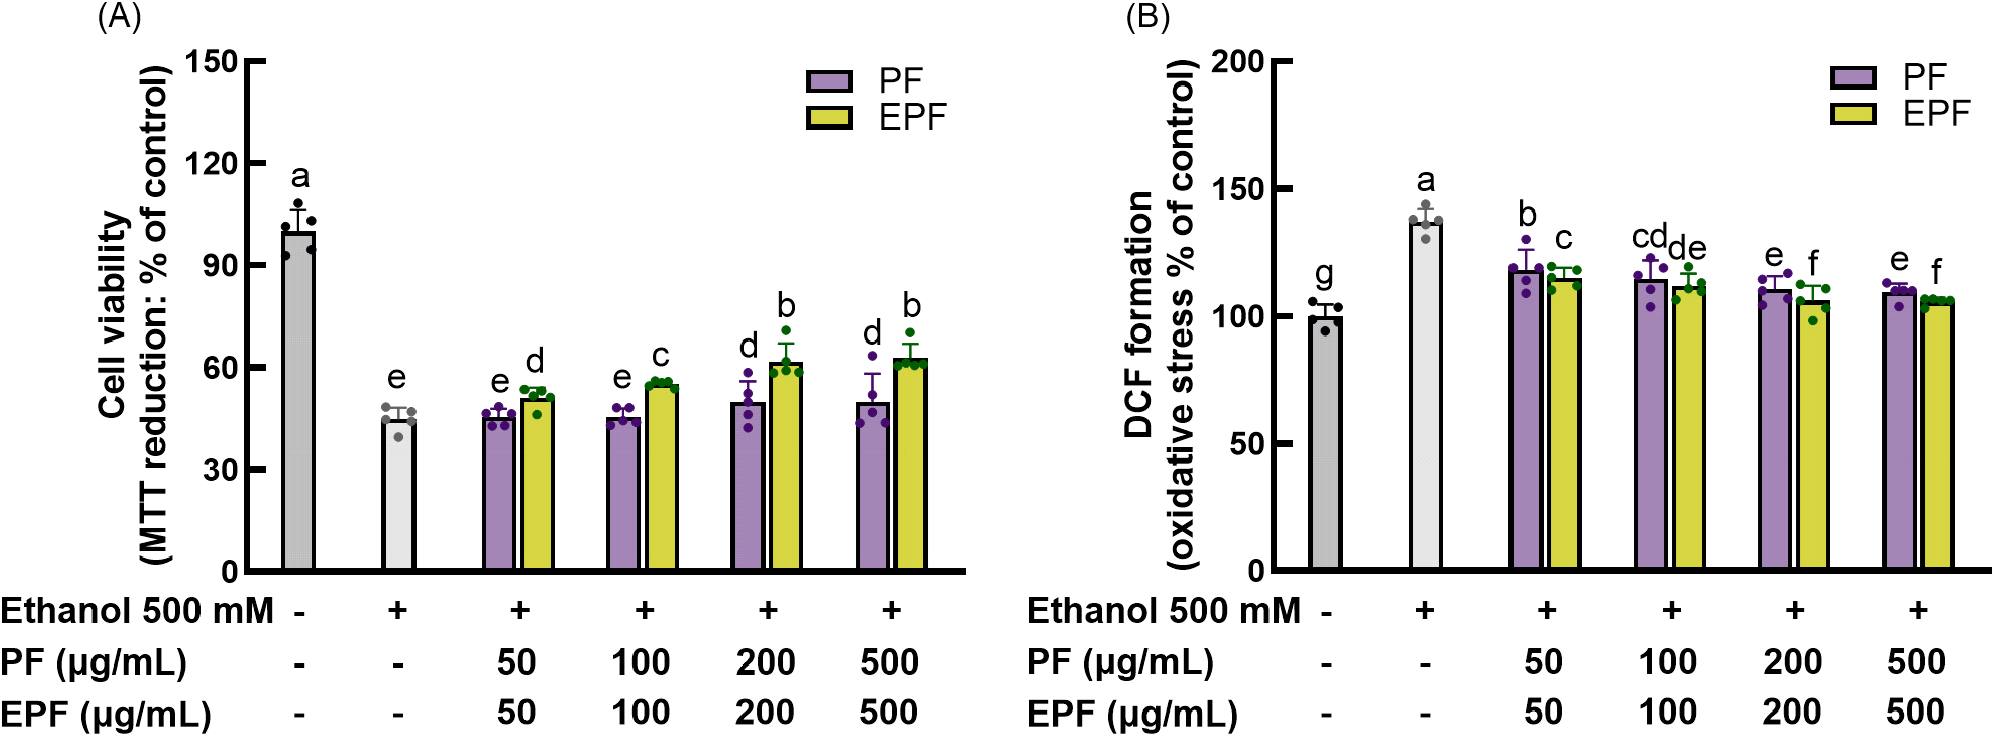
에탄올 처리에 의해 증가한 세포 내 ROS는 산화 스트레스를 유발하여 간세포 손상과 밀접하게 관련되므로(Contreras-Zentella 등, 2022; Gjorgjieva 등, 2019), 이를 억제할 수 있는 항산화 소재의 탐색이 중요하다. 감의 항산화 활성은 protocatechuic acid, gallic acid 등 페놀산류와 catechin, epicatechin과 같은 플라보노이드류를 비롯하여, vitamin C, 카로티노이드류(β-cryptoxanthin, lycopene, β-carotene, lutein, zeaxanthin) 및 proanthocyanidins에 의해 기인하는 것으로 보고되어 있다(Yaqub 등, 2016). 특히 protocatechuic acid는 gallic acid, caffeic acid, vanillic acid, syringic acid 등과 구조적으로 유사한 hydroxybenzoic acid 계열 페놀산으로, DPPH 및 ABTS 라디칼 소거 활성, O2•⁻ 및 hydroxyl radical 소거 활성, 금속 이온 킬레이션 활성 등 다양한 in vitro 항산화 평가에서 농도 의존적인 항산화 활성을 나타내는 것으로 보고되었다(Kakkar와 Bais, 2014). 이러한 선행연구 결과를 고려할 때, 본 연구에서 확인된 에탄올 유도 산화 스트레스 조건에서의 간세포 보호 효과는 감에 함유된 페놀성 화합물의 항산화 작용과 관련이 있는 것으로 판단된다. 결과적으로, EPF는 에탄올에 의해 유도된 산화 스트레스 환경에서 HepG2 세포의 생존율을 회복시키고 ROS 생성을 억제함으로써 항산화 및 간세포 보호 효과를 나타내었으며, 이는 감 유래 물 추출물이 알코올성 간 손상 예방을 위한 기능성 소재로 활용될 수 있는 가능성을 시사한다.
HepG2 세포 내 산화 스트레스 및 세포 보호 효과 평가에서 PF 대비 EPF가 상대적으로 우수한 세포 생존율 회복 및 ROS 억제 효과를 나타낸 결과를 토대로, 에탄올에 의해 유도된 HepG2 세포 내 지질축적 억제 효과는 EPF를 대상으로 추가 평가하였다(Fig. 3). 세포 내 지질 축적을 Oil Red O 염색법으로 염색한 후, 현미경을 이용하여 접안렌즈(10×)와 대물렌즈(20×)로 총 200× 배율에서 관찰한 결과(Fig. 3A), 정상 대조군 대비 에탄올 처리군에서 지방구 형성이 증가하여 세포 내 지질 축적이 유도된 것으로 확인되었다. 반면, EPF와 에탄올을 병용 처리한 군에서는 에탄올 처리군 대비 지방구 형성이 감소하는 경향을 보였다. Oil Red O 염색액을 100% isopropanol로 용출시켜 500 nm에서 흡광도를 측정하여 지방구의 염색 정도를 정량화한 결과(Fig. 3B), 정상 대조군(100.00%) 대비 에탄올 처리군에서 지질축적 수준이 120.60%로 유의적으로 증가하였다. 반면, EPF 100 μg/mL 처리군에서는 114.57%로 감소 경향을 나타내었으며, 200 및 300 μg/mL 처리군에서는 각각 108.74% 및 95.02%로 세포 내 지질축적 수준이 농도 의존적으로 감소하였다. 특히, 200 및 300 μg/mL 처리군의 지질축적 수준은 정상 대조군과 유의적인 차이를 나타내지 않아, EPF가 에탄올에 의해 유도된 HepG2 세포 내 지질축적을 억제함으로써, 지질축적 관련 간세포 손상 완화에 기여할 가능성을 시사하였다.
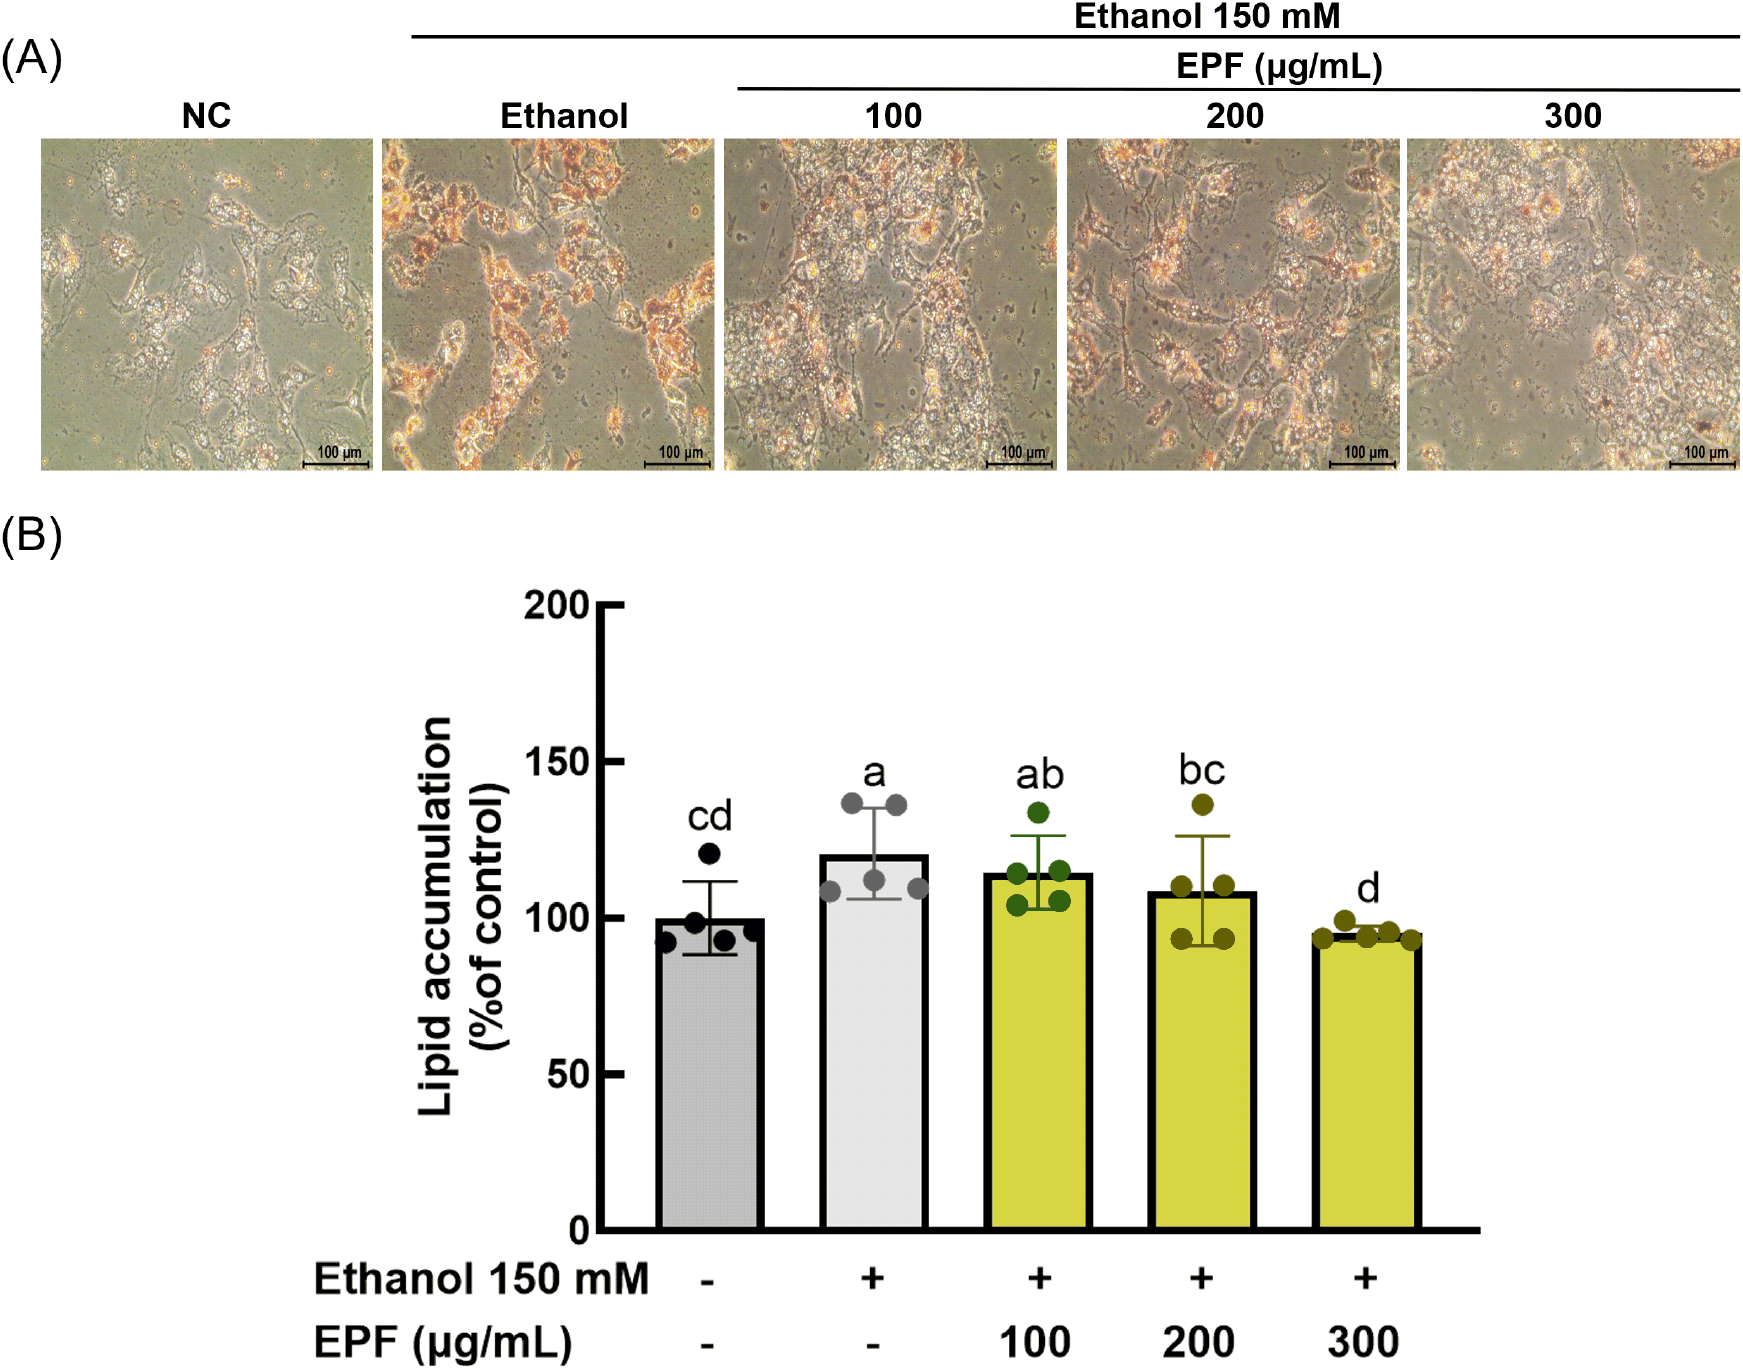
알코올의 과도한 대사는 간세포 내 환원형 조효소인 NADH의 축적을 유도하여 지방산 β-산화를 억제하고, 동시에 중성지방 합성을 촉진함으로써 간세포 내 지방축적을 증가시키는 것으로 알려져 있다(Gao와 Bataller, 2011). 한편, Kang 등(2022)은 고지방식이로 유도된 지방간 마우스 모델에 감 물 추출물 투여 시 간 조직 내 AMP-activated protein kinase (AMPK)의 인산화가 유의적으로 증가하고, peroxisome proliferator-activated receptor gamma (PPARγ) 및 fatty acid synthase (FAS) 발현이 감소하여 간 내 지질 축적이 억제되었음을 보고하였다. AMPK는 세포 내 에너지 항상성을 조절하는 핵심 인자로서, 활성화될 경우 지방산 β-산화를 촉진하고 지방합성을 억제함으로써 간 조직 내 지질 대사를 개선하는 것으로 알려져 있다(Lee 등, 2023). 이러한 선행연구를 고려할 때, 본 연구에서 확인된 EPF의 지질 축적 억제 효과는 AMPK 활성화와 같은 지질 대사 조절 경로와 연관될 가능성이 있으며, 이에 대한 추가적인 기전 연구가 필요할 것으로 판단된다.
ALDH 활성 평가 결과를 근거로 단감 과육 기반 물 추출물(PF 및 EPF)을 후보 시료로 선정한 후, 급성 에탄올 유도 마우스 모델에서 혈중 알코올 및 아세트알데하이드 농도 변화를 평가하였다. 숙취 해소 효능을 검증하기 위해 25% 에탄올(5 g/kg of body weight)을 단회 경구 투여한 후, 혈중 알코올 및 아세트알데하이드 농도를 0, 30, 60, 90 및 120분에 측정하였으며, 전체 결과는 Fig. 4에 제시하였다. 혈중 알코올 농도를 측정한 결과(Fig. 4A), 에탄올 투여 후, 0분 시점에서 실험군 간 유의적인 차이는 확인되지 않았다. 하지만, 에탄올 투여 후, 30분 시점에서 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 알코올 농도는 각각 40.90, 78.31, 69.28 및 65.43 μg/mL로 나타났다. 에탄올 투여 후, 60분 시점에서는 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 알코올 농도가 각각 39.66, 93.62, 74.72 및 67.55 μg/mL로 나타났으며, 에탄올 투여 후, 90분 시점에서는 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 알코올 농도가 각각 39.92, 78.92, 67.97 및 61.43 μg/mL로 나타났다. 또한, 에탄올 투여 후, 120분 시점에서 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 알코올 농도는 각각 40.45, 61.28, 51.02 및 46.62 μg/mL로 나타났다. 결과적으로 에탄올 투여 후 60분 시점에서 혈청 에탄올 농도가 가장 높게 측정되었으며, PF100 및 EPF100 투여군에서는 유의적으로 감소하는 것을 확인하였다. 특히, EPF100 투여군에서 PF100 투여군보다 유의적으로 에탄올 농도가 감소하기 시작하였다. 이는 시간에 따른 혈중 알코올 농도 변화를 정량적으로 비교하기 위해 산출한 곡선 아래 면적값(area under the curve, AUC) 결과와도 일치함을 보였다(Fig. 4B). 그 결과, 정상 대조군(4,818.70 μg/mL × min) 대비 에탄올 투여군은 9,003.93 μg/mL × min으로 유의적으로 증가한 반면, PF100 및 EPF100 투여군은 7,721.63 μg/mL × min 및 7,084.32 μg/mL × min으로 에탄올 투여군 대비 유의적으로 낮은 수준을 나타내었다. 특히 EPF100 투여군은 PF100 투여군보다 유의적으로 낮은 AUC 값을 나타내었다.
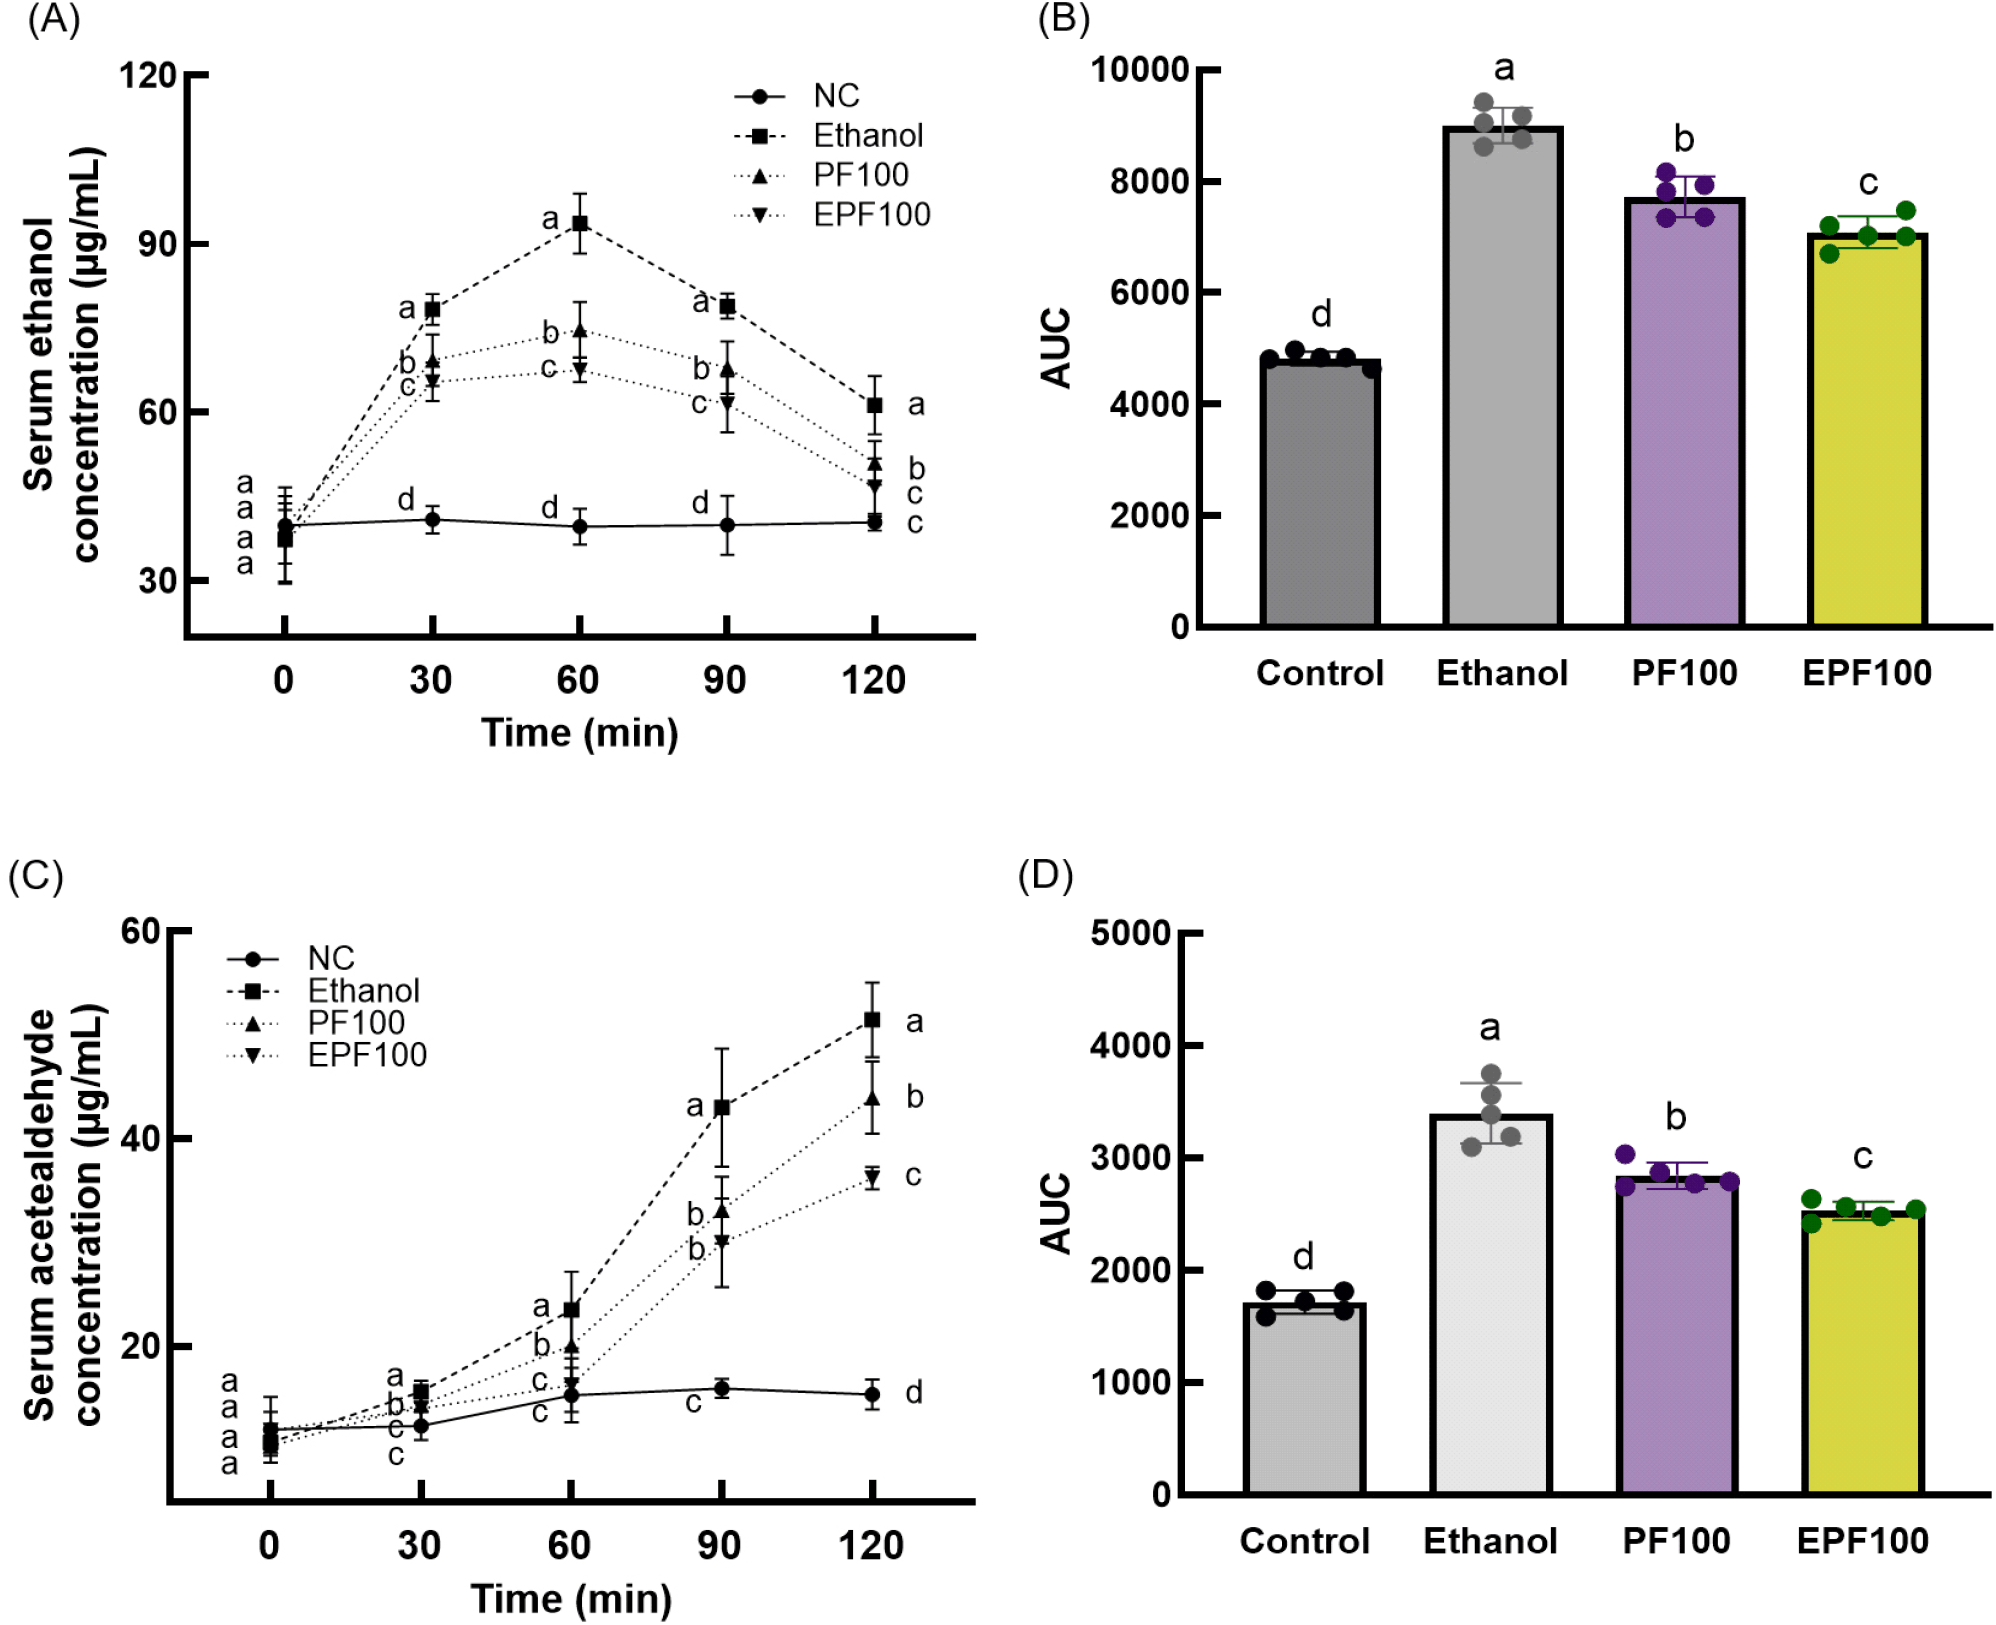
이어서 혈중 아세트알데하이드 농도를 측정한 결과(Fig. 4C), 에탄올 투여 후, 0분 시점에서 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 아세트알데하이드 농도는 실험군 간 유의적인 차이는 확인되지 않았다. 에탄올 투여 후, 30분 시점에서는 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 아세트알데하이드 농도가 각각 12.33, 15.63, 14.34 및 13.97 μg/mL로 나타났다. 에탄올 투여 후, 60분 시점에서는 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 아세트알데하이드 농도가 각각 15.29, 23.48, 20.08 및 16.25 μg/mL로 나타났으며, 에탄올 투여 후, 90분 시점에서는 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 아세트알데하이드 농도가 각각 15.93, 43.00, 33.11 및 29.97 μg/mL로 나타났다. 또한, 에탄올 투여 후, 120분 시점에서 정상 대조군, 에탄올 투여군, PF100 및 EPF100 투여군의 혈중 아세트알데하이드 농도는 각각 15.36, 51.48, 43.96 및 36.20 μg/mL로 나타났다. 에탄올 투여 후, 30분 시점에서 에탄올 투여군의 혈중 아세트알데하이드 농도는 정상 대조군 대비 증가하였으며, 60분 시점 이후로 가파르게 증가하여 120분 시점에서 가장 높게 측정되었다. 하지만, PF100 및 EPF100 투여군은 에탄올만 투여한 군보다 혈중 아세트알데하이드 농도가 유의적으로 감소하였다. 특히, 에탄올 투여 후, 120분 시점에서 PF100 투여군 대비 EPF100 투여군에서 혈청 아세트알데하이드 농도가 유의적으로 감소하는 것을 확인하였다. 추가로, 혈중 아세트알데하이드 농도의 AUC를 산출한 결과(Fig. 4D), 정상 대조군(1,716.08 μg/mL × min) 대비 에탄올 투여군은 3,396.34 μg/mL × min으로 유의적으로 증가한 반면, PF100 및 EPF100 투여군은 2,841.00 μg/mL × min 및 2,527.05 μg/mL × min으로 에탄올 투여군 대비 유의적으로 낮은 수준을 나타내었다. 특히 EPF100 투여군은 PF100 투여군 대비 유의적으로 낮은 AUC 값을 나타내었다. 이상의 결과를 종합하면, PF 및 EPF는 급성 에탄올 유도 마우스 모델에서 혈중 알코올 및 아세트알데하이드 농도를 낮추는 효과를 나타냈으며, 특히 EPF는 PF보다 전반적으로 우수한 알코올 대사 개선 효과를 보였다. 따라서 본 연구에서는 ALDH 활성, HepG2 세포 보호 효과 및 급성 에탄올 유도 마우스 모델 결과를 종합적으로 고려하여 EPF를 만성 에탄올 유도 마우스 모델 평가를 위한 최종 후보 소재로 선정하였다.
Matsuzaki 등(2022)은 감 열매 유래 폴리페놀이 알코올 대사의 주요 독성 중간산물인 아세트알데하이드를 직접 포획하여 그 농도를 감소시키고, 아세트알데하이드에 의해 유발되는 DNA 손상을 유의적으로 억제한다고 보고하였다. 이러한 결과는 감 유래 폴리페놀이 알코올 대사 과정 중 생성되는 독성 대사산물의 영향을 완화할 수 있음을 시사하며, 감 추출물의 알코올 대사 개선 및 숙취 해소 효과에 대한 근거를 제공한다. 본 연구에서는 단감 과육 기반 물 추출물(PF 및 EPF) 투여군에서 혈중 알코올 및 아세트알데하이드 농도가 감소하는 경향이 확인되었으며, 이는 PF 및 EPF가 알코올 대사 과정에서 생성되는 독성 대사산물의 축적을 완화하는 데 관여할 가능성을 시사한다. 다만, 본 연구에서 혈중 아세트알데하이드 농도는 에탄올 투여 후 120분 시점까지 측정되었으며, 에탄올 투여군에서는 120분 시점까지 지속적으로 증가하는 경향을 보였다. 이는 본 연구의 측정 종료 시점이 아세트알데하이드 농도의 최고점에 도달하기 전이었을 가능성을 시사한다. 따라서 혈중 아세트알데하이드 농도의 AUC를 산출한 결과(Fig. 4D)는 0-120분 측정 구간 내 노출량을 반영하는 지표로 해석되어야 하며, EPF 투여에 따른 아세트알데하이드 총 노출량 감소 효과를 완전히 평가하기에는 한계가 있다.
에탄올 섭취에 따른 마우스의 체중 변화 결과는 Fig. 5A에 제시하였다. 0주 차의 초기 체중은 모든 실험군에서 평균 19.29 g 수준으로 군 간 유의적인 차이를 보이지 않았다. 8주간의 실험 종료 후, 에탄올 투여군의 체중은 23.14 g으로 정상대조군의 25.71 g에 비해 유의적으로 낮게 나타났으며, 이는 만성 에탄올 섭취가 마우스의 체중 증가를 억제하였음을 시사한다. 반면, EPF100 및 EPF200 투여군의 체중은 각각 23.86 g 및 24.43 g으로 에탄올 투여군에 비해 유의적으로 높게 나타나, EPF 투여가 만성 에탄올 섭취로 인한 체중 증가 저하를 일부 완화하는 것으로 확인되었다. 8주간의 에탄올 섭취에 따른 마우스의 상대 간 중량 측정 결과는 Fig. 5B에 제시하였다. 에탄올 투여군의 상대 간 중량은 4.06%로 정상대조군(3.59%)에 비해 유의적으로 증가하였으며, 이는 만성 에탄올 섭취가 체중 대비 간 중량 증가를 유도하였음을 시사한다. 반면, EPF100 및 EPF200 투여군은 각각 3.77% 및 3.64%로 에탄올 투여군에 비해 낮은 상대 간 중량을 나타내어, EPF 투여가 에탄올로 유도된 상대 간 중량 증가를 완화하는 데 기여할 수 있음을 확인하였다.
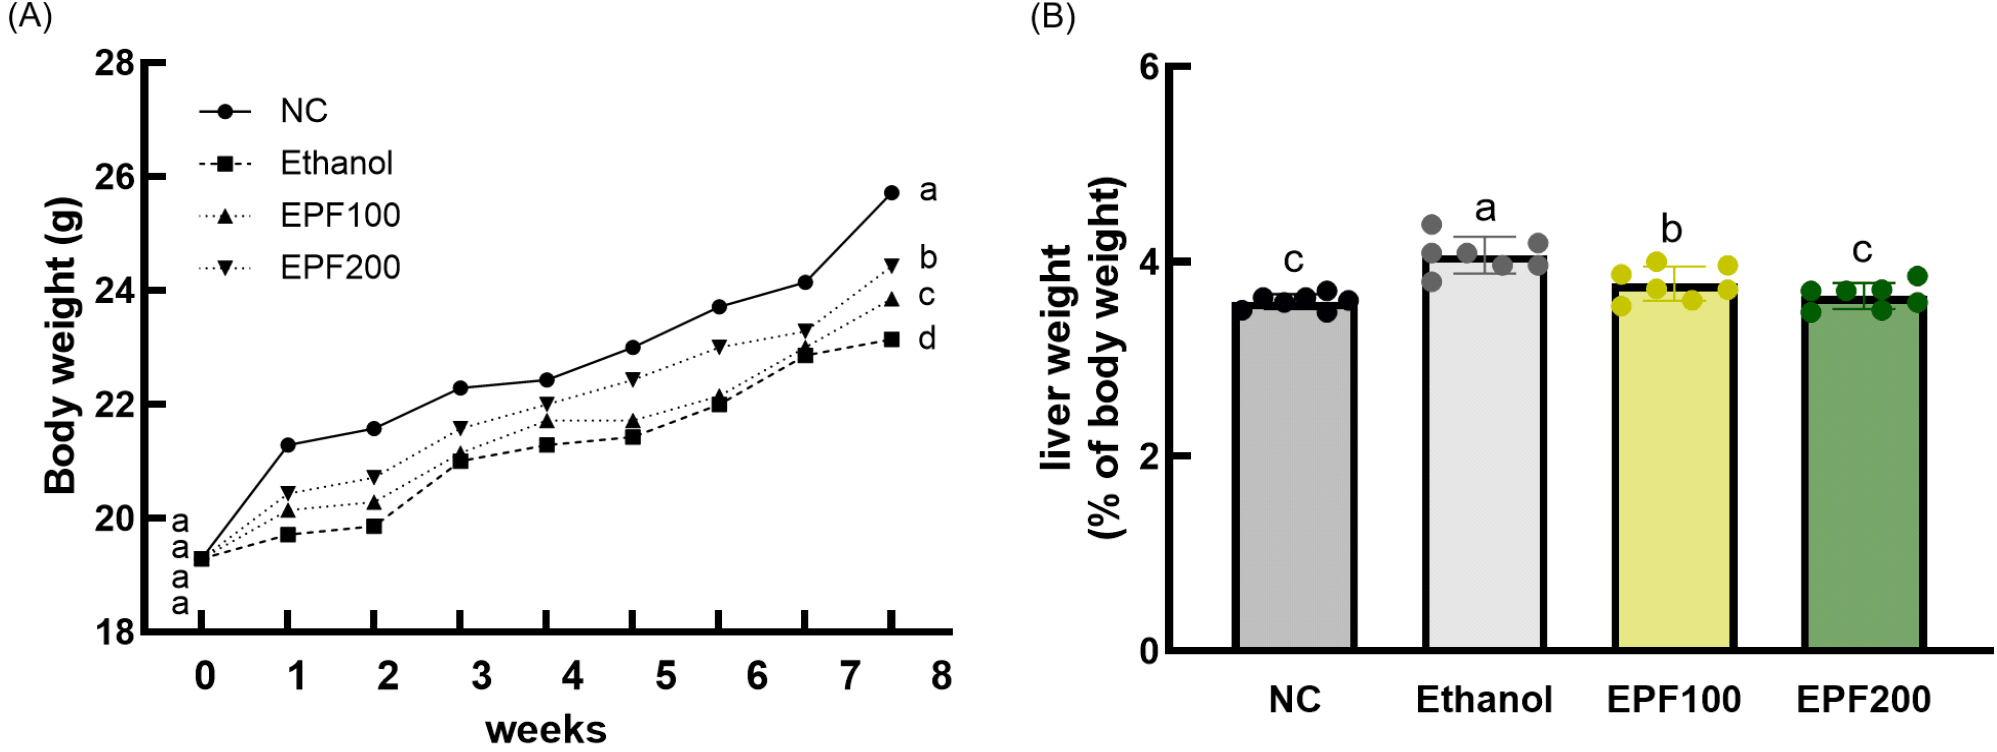
실험동물의 체중, 간 무게 및 체중에 대한 간 중량 비율은 알코올성 간 손상 모델에서 전신 독성 및 간 비대 여부를 평가하는 기본 지표로 사용된다(Lee 등, 2020). 본 연구에서 8주간 에탄올을 섭취한 에탄올 투여군은 정상대조군에 비해 체중이 유의적으로 낮고 상대 간 중량이 유의적으로 증가하였으며, 이는 6주간의 에탄올 섭취에 의해 체중 감소와 체중 대비 간 중량 증가가 유도되었다고 보고한 선행 연구와 유사한 경향을 보였다(Jeong 등, 2025). 다만, 본 연구에서는 간 조직의 조직학적 분석을 수행하지 않아 EPF의 간 보호 효과를 형태학적 수준에서 직접적으로 확인하지 못하였으므로, 향후 H&E 염색 등을 기반으로 한 조직병리학적 평가를 통해 EPF의 간 보호 효과를 형태학적 수준에서 보다 정밀하게 검증할 필요가 있다.
급성 에탄올 마우스 모델에서 EPF는 PF 투여군 대비 혈중 아세트알데하이드 농도를 유의적으로 감소시키는 효과를 나타내어, EPF를 최종 후보 시료로 선정하였다. 이를 바탕으로 만성 에탄올 섭취로 유도된 마우스 모델에 8주간 에탄올 및 시료를 투여한 후, 혈청에서 간기능 관련 생화학적 지표를 측정하였으며, 그 결과는 Table 2에 제시하였다. AST, ALT 및 ALP 활성을 측정한 결과, 정상 대조군에서 각각 42.00 U/L, 28.43 U/L 및 257.83 U/L로 나타났으며, 에탄올 투여군에서는 각각 66.71 U/L, 45.14 U/L 및 308.86 U/L로 유의적으로 증가하였다. EPF100 투여군에서는 각각 45.86 U/L, 29.71 U/L 및 267.14 U/L로 나타나 에탄올 투여군 대비 유의적으로 감소하였다. 또한 AST와 ALT 활성은 정상 대조군과 통계적으로 유의한 차이를 보이지 않았으나, ALP 활성은 정상 대조군과 유의한 차이를 보였다. 반면 EPF200 투여군에서는 AST, ALT 및 ALP 활성이 각각 40.43 U/L, 24.29 U/L 및 255.29 U/L로 나타나 정상 대조군과 통계적으로 유의한 차이를 보이지 않았다. 한편, 혈청 중 GGT 활성은 모든 실험군 간 통계적으로 유의한 차이를 나타내지 않았다. 이는 C57BL/6 마우스 모델에서 8주간의 만성 에탄올 투여 조건이 GGT 활성을 유의적으로 변화시킬 정도의 담도계 손상 또는 GGT 효소 유도를 충분히 유발하지 않았을 가능성을 시사한다.
간은 간세포 손상이 점진적으로 진행되더라도 초기 단계에서는 임상 증상이 뚜렷하지 않아 조기 진단이 어려운 장기이며(Battle, 2025), 이에 따라 혈청 생화학적 지표는 알코올성 간질환의 진단 및 예방 및 치료 효과를 판단하는 데 중요한 지표로 활용되고 있다(Battle, 2025). 만성적인 알코올 섭취는 간세포 손상과 세포막 투과성 증가를 유발하여, 간세포에 주로 존재하는 AST와 간을 포함한 여러 조직에 분포하는 ALP의 혈중 유출을 증가시키는 것으로 알려져 있다(Kim 등, 2016). 또한 알코올은 담도계 이상 및 담즙 정체를 동반하여 ALP 수치 상승을 초래하며, GGT는 간 및 담관 상피세포에 존재하는 효소로서 알코올에 의해 유도되어 혈중 활성 증가를 나타내는 것으로 보고되었다(Kim, 2009). 이러한 결과는 EPF가 에탄올로 유도된 간세포 손상 및 담도계 기능 이상을 완화하여 알코올성 간 손상에 대한 간 보호 효과에 기여할 가능성을 시사한다.
에탄올 섭취로 유도된 간 손상 모델에서 EPF 섭취가 미토콘드리아 기능에 미치는 영향을 평가한 결과는 Fig. 6에 제시하였다. 마우스 간 조직 유래 미토콘드리아에서 산화적 스트레스 수준을 평가하기 위해 ROS 생성을 측정한 결과(Fig. 6A), 에탄올 투여군은 정상 대조군(100.00%) 대비 148.78%로 유의적으로 증가하였다. 반면, EPF를 섭취한 EPF100 및 EPF200 투여군에서는 각각 113.37% 및 114.28%의 ROS 생성 수준을 나타내어 에탄올 투여군 대비 유의적으로 감소하였다. 이러한 결과는 EPF 섭취가 에탄올로 유도된 산화 스트레스를 효과적으로 완화함으로써 미토콘드리아 기능 보호에 기여할 수 있음을 시사한다. 마우스 간 조직 유래 미토콘드리아에서 MMP 함량을 측정한 결과(Fig. 6B), 에탄올 투여군은 정상 대조군(100.00%) 대비 67.03%로 유의적으로 감소하였다. 반면, EPF를 섭취한 EPF100 및 EPF200 투여군에서는 각각 79.21% 및 88.41%의 MMP 수준을 나타내어 에탄올 투여군 대비 유의적으로 증가하였다. 이러한 결과는 EPF 섭취가 에탄올에 의해 저하된 미토콘드리아 막전위를 회복시켜 미토콘드리아 기능 유지에 기여할 수 있음을 시사한다. 마우스 간 조직 유래 미토콘드리아에서 ATP 생성량을 측정한 결과(Fig. 6C), 정상 대조군은 36.35 nM/mg of protein으로 나타난 반면, 에탄올 투여군에서는 20.11 nM/mg of protein으로 유의적으로 감소하였다. 반면, EPF를 섭취한 EPF100 및 200 투여군에서는 각각 23.23 및 30.20 nM/mg of protein으로 나타나 에탄올 투여군 대비 ATP 생성량이 유의적으로 증가하였다. 이러한 결과는 EPF 섭취가 에탄올에 의해 저하된 미토콘드리아의 에너지 대사 기능을 회복시켜 ATP 생성 수준을 정상화하는 데 기여할 수 있음을 시사한다.
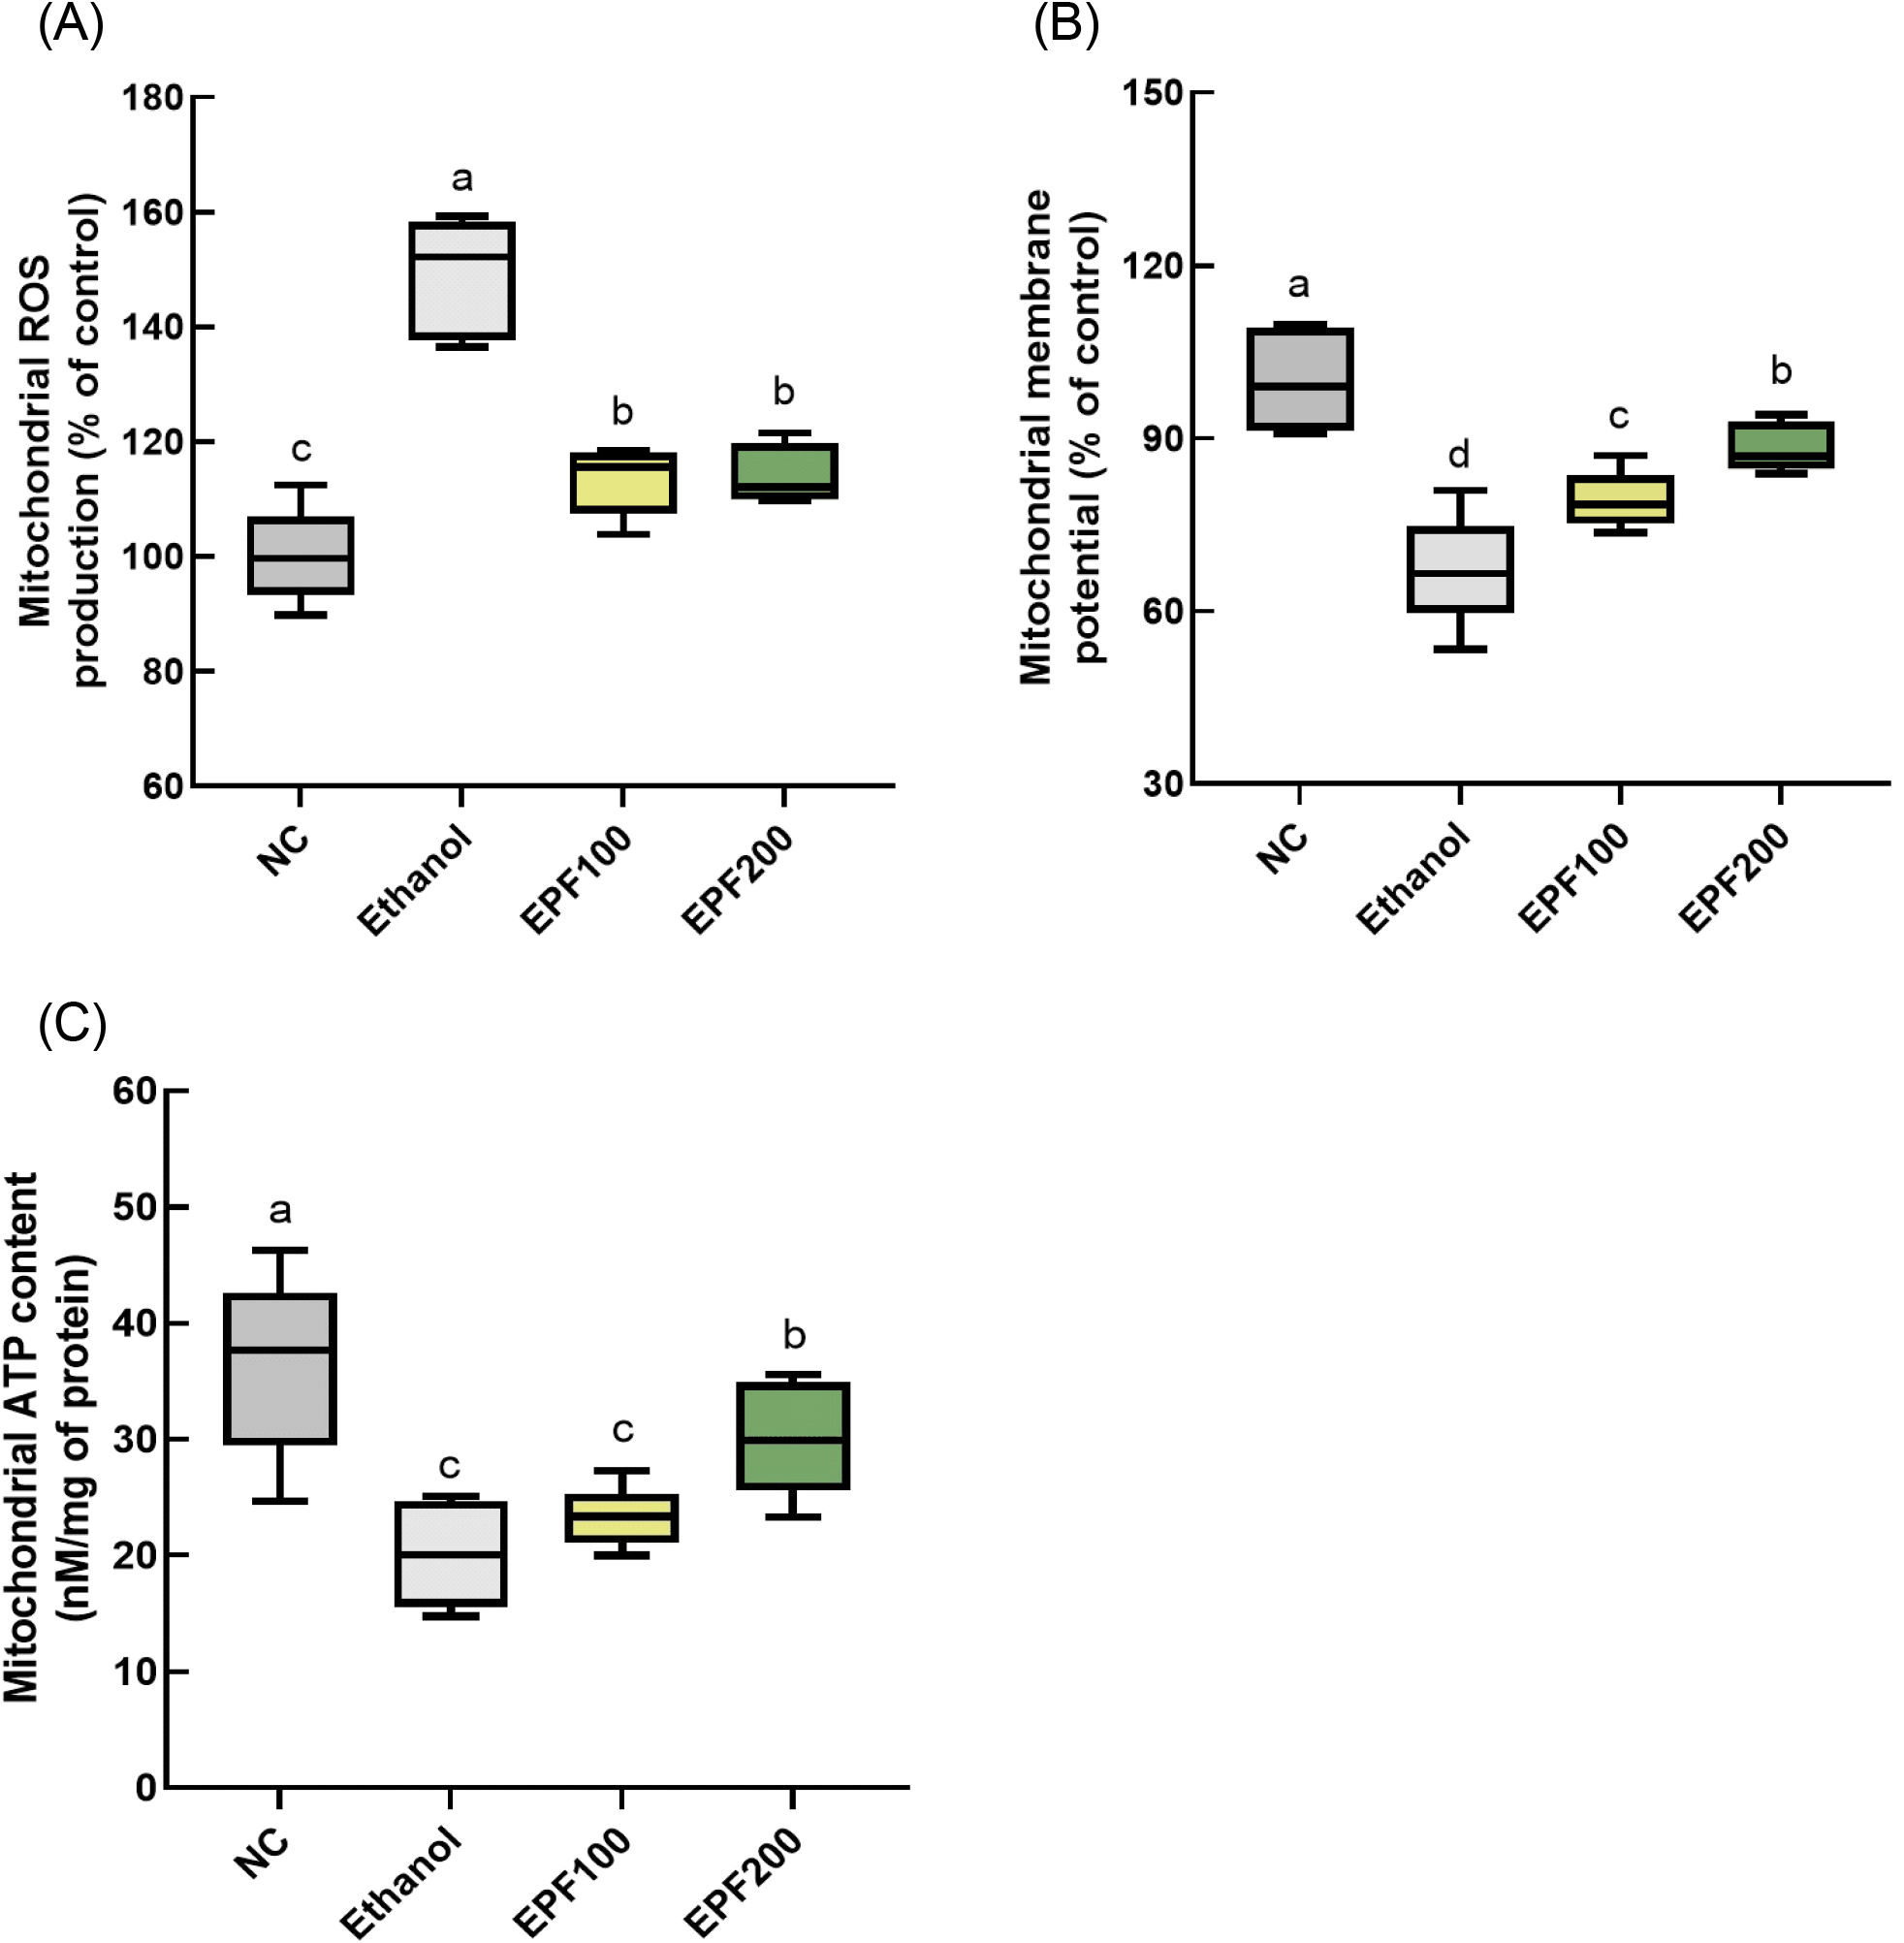
알코올 대사의 증가는 ADH와 ALDH에 의해 조효소인 NAD+가 환원형인 NADH로 전환되면서 간 내 NADH/NAD+ 비율의 상승을 초래한다(Zakhari, 2006). 과도하게 축적된 NADH는 미토콘드리아 전자전달계(complexes I 및 III)에 전자를 과잉 공급하여 과환원 상태로 만들고, 이에 따라 전자 누출이 증가하면서 분자산소가 O2•⁻로 환원되어 ROS 생성을 촉진한다(Zakhari, 2006). Yoo 등(2019)은 감 에탄올 추출물이 Aβ로 유도된 인지장애 마우스 모델에서 미토콘드리아 내 ROS를 감소시키고, MMP 및 ATP 수준을 회복시켜 미토콘드리아 기능을 개선한다고 보고하였다. 또한, Kang 등(2022)의 연구에 따르면 고지방식이로 유도된 마우스 모델에서 감 물 추출물 투여가 간 조직 내 ROS 생성을 억제하고 MMP와 ATP 생성을 유의미하게 증가시킴으로써 에너지 대사를 정상화하였음을 보고하였다. 이러한 선행 연구들은 감 유래 추출물이 다양한 병태 생리적 조건에서 미토콘드리아 항상성 유지에 기여할 가능성을 시사한다. 본 연구에서 관찰된 EPF의 효과 역시 이러한 선행연구와 일관된 경향을 보였으며, 이는 시료에 함유된 폴리페놀 및 페놀산류와 같은 항산화 성분이 알코올 대사 과정에서 과도하게 생성되는 ROS를 억제함으로써 미토콘드리아 막의 산화적 손상을 완화하고 전자전달계 기능을 유지하여 ATP 생성을 정상화한 결과로 해석될 수 있다. 다만, 본 연구에서는 JC-1 분석 시 590/530 nm red/green fluorescence ratio를 산출하는 대신 590 nm 단일 파장의 red fluorescence intensity만을 측정하였다는 방법론적 한계가 있다. 따라서 향후 red/green fluorescence ratio 기반의 ratiometric 분석을 통해 보다 정밀하게 검증할 필요가 있다.
EPF 아세트산에틸 분획물 내 지표 성분인 페놀성 화합물을 확인하고 정량하기 위해 HPLC 분석을 수행하였으며, 그 결과는 Fig. 7에 제시하였다. HPLC 분석은 254 nm 파장에서 검출된 UV-Vis 스펙트럼과 표준물질의 retention time을 기준으로 동일 여부를 확인하였다. EPF 아세트산에틸 분획물의 크로마토그램을 protocatechuic acid 표준물질과 비교한 결과, 해당 표준물질과 UV-Vis 스펙트럼 및 retention time이 일치하는 주요 피크가 확인되었으며, 이를 protocatechuic acid로 판단하여 정량 분석을 수행하였다. HPLC 분석 결과, 254 nm 파장에서 15.48분에 검출된 peak는 protocatechuic acid 표준물질의 peak (15.48분)와 일치하였으며, similarity는 998.14로 나타났다(Fig. 7A). 이를 통해 EPF 아세트산에틸 분획물에서 protocatechuic acid가 검출됨을 확인하였고, 정량 분석 결과, protocatechuic acid의 함량은 EPF 아세트산에틸 분획물 기준 600 μg/g dry weight로 확인되었다(Fig. 7B).
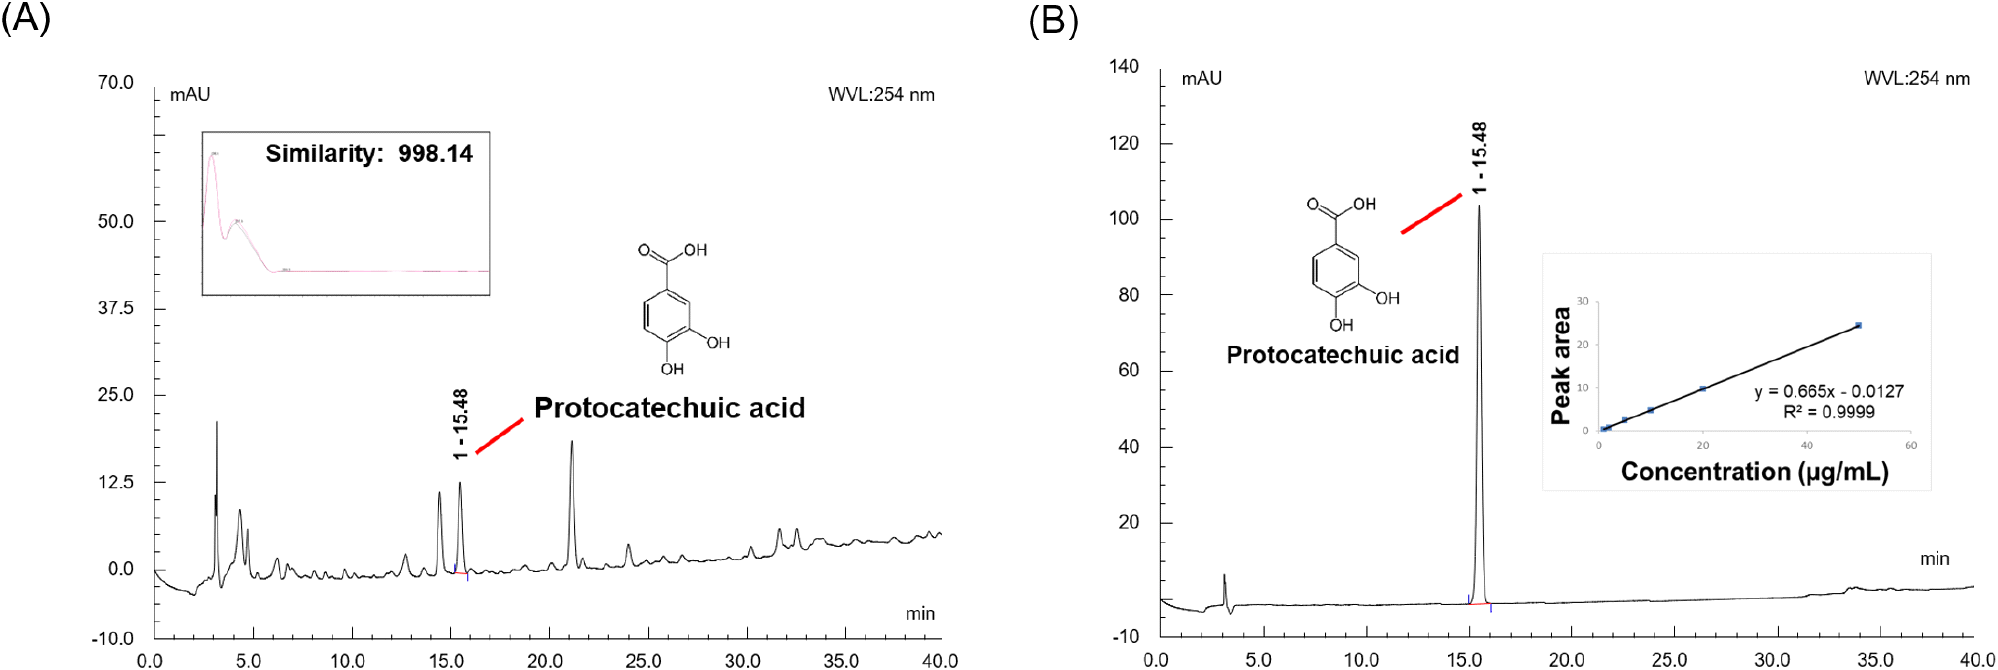
Protocatechuic acid는 benzoic acid 유도체에 속하는 대표적인 페놀산으로 3,4-dihydroxybenzoic acid 구조를 가지며, 두 개의 페놀성 하이드록실기에 의해 전자 및 수소 제공 능력이 우수하여 강력한 라디칼 소거 활성을 나타낸다(Zhang 등, 2021). 선행연구에 따르면 protocatechuic acid는 산화 스트레스를 유도한 다양한 마우스 모델에서 ROS 생성을 억제하고, superoxide dismutase (SOD), CAT, glutathione peroxidase (GPx) 등의 항산화 효소 활성을 증가시키는 반면, xanthine oxidase (XOD) 및 NADPH oxidase (NOX) 활성과 malondialdehyde (MDA) 생성을 감소시켜 항산화 방어체계를 강화하는 것으로 보고되었으며(Zhang 등, 2021), 특히 ehrlich ascites carcinoma 이식 마우스 모델에서 protocatechuic acid 투여는 nuclear factor erythroid 2-related factor 2 (Nrf2) 표적 유전자인 heme oxygenase-1 (HO-1), glutamate-cysteine ligase catalytic subunit (GCLC), glutamate-cysteine ligase modifier subunit (GCLM)의 발현과 NAD(P)H:quinone oxidoreductase 1 (NQO1) 활성을 증가시켜 체내 항산화 방어체계를 활성화하는 것으로 보고되었다(Bovilla 등, 2021). 또한 lipopolysaccharide (LPS)로 산화 스트레스를 유도한 마우스 모델에서도 CAT 활성과 total antioxidant capacity를 증가시키고 Nrf2 및 NQO1 발현을 회복시켜 조직 내 산화 손상을 완화하는 것으로 나타났다(Salama 등, 2023). 이러한 결과는 protocatechuic acid가 Nrf2 기반 항산화 방어체계를 활성화함으로써 산화 스트레스를 효과적으로 완화할 수 있음을 시사한다. 한편, 감 유래 시료의 페놀성 성분 조성에 관한 선행연구에서도 protocatechuic acid가 역상 C18 column을 이용한 HPLC 분석을 통해 확인 및 정량된 것으로 보고되었다(Lee 등, 2012). 해당 연구에서는 표준물질과의 retention time 비교 및 검량선을 기반으로 9종의 페놀산류와 7종의 카테킨류를 분리 및 정량하였으며, protocatechuic acid의 함량은 2.01-5.65 mg/kg 범위로 확인되었다(Lee 등, 2012). 이러한 선행연구 결과는 본 연구에서 EPF 아세트산에틸 분획물의 HPLC 분석을 통해 protocatechuic acid가 확인된 결과와 일치하며, 감 과육 유래 시료에서 해당 저분자 페놀산류가 공통적으로 분포함을 시사한다. 이상의 결과를 종합할 때, EPF 아세트산에틸 분획물에서 확인된 protocatechuic acid는 EPF 전체 추출물에서 관찰된 항산화 활성 및 간 보호 효과에 일부 기여했을 가능성이 있다. 다만, 본 연구의 효능 평가는 EPF 전체 추출물을 대상으로 수행되었으므로, EPF 아세트산에틸 분획물에서 확인된 protocatechuic acid의 직접적인 기여도와 분획물 내 다양한 생리활성 성분의 조성 그리고 효소 처리에 따른 성분 조성 변화와 생리활성 차이의 관련성을 명확히 규명하기 위해서는 향후 ultra-performance liquid chromatography-quadrupole time-of-flight tandem mass spectrometry (UPLC-Q-TOF-MS/MS) 기반의 추가 분석이 필요할 것으로 판단된다. 또한, 본 연구에서 EPF는 PF에 비해 HepG2 세포 보호 효과, 에탄올 유도 ROS 생성 억제 및 급성 에탄올 유도 마우스 모델에서 상대적으로 우수한 효과를 나타내었다. 이러한 차이는 효소 처리에 따른 페놀성 화합물의 용출성 증가 또는 개별 페놀성 성분 조성 변화와 관련되었을 가능성이 있으며, 향후 PF와 EPF 간 비교 성분 분석을 통해 추가적으로 확인할 필요가 있다.
4. 요약
본 연구에서는 단감 과육 및 과피의 물 추출물 및 효소 처리 추출물(PF, EPF, PP 및 EPP)에서 시료의 항산화 활성과 알코올 대사 관련 효소 활성을 in vitro 수준에서 평가하고, 이를 토대로 후보 시료를 선정한 후, HepG2 세포를 이용하여 산화 스트레스 억제 및 지질축적 억제 효과를 검증하였다. 또한 급성 및 만성 에탄올 유도 마우스 모델을 적용하여 숙취 해소 효과와 간 보호 효과를 종합적으로 평가하였다. 시료 간 in vitro ALDH 활성 비교 결과, 단감 과피 유래 추출물보다 과육 유래 추출물에서 상대적으로 높은 활성이 확인되어 이를 후속 세포 실험의 후보 시료로 선정하였다. 선정된 후보 물질을 대상으로 한 세포 실험에서, 단감 과육을 물로만 추출한 PF보다 효소 처리한 EPF가 에탄올로 유도된 산화 스트레스 조건에서 HepG2 세포의 생존율을 유의적으로 회복시키고 ROS 생성을 억제하였으며, 동시에 에탄올로 유도된 세포 내 지질 축적을 농도 의존적으로 감소시켰다. 아울러, 급성 에탄올 유도 마우스 모델에서 EPF 투여군은 PF 투여군 대비 혈중 알코올 및 아세트알데하이드 농도를 감소시키는 경향을 보여 체내 알코올 대사 개선 가능성을 시사하였다. 만성 에탄올 섭취 마우스 모델에서는 EPF 투여에 따라 혈청 AST, ALT 및 ALP 수치가 유의적으로 개선되었으며, 간 조직 유래 미토콘드리아에서 ROS 생성 감소와 함께 MMP의 회복 및 ATP 생성량 증가가 확인되어, EPF 섭취가 에탄올에 의해 저하된 미토콘드리아 기능을 효과적으로 보호하고 개선함을 확인하였다. 마지막으로, EPF ethyl acetate 분획물의 성분 분석 결과, protocatechuic acid가 HPLC를 통해 확인되었다. 이러한 결과는 본 연구에서 관찰된 항산화 활성, 알코올 대사 개선 효과 및 간 보호 효과가 페놀성 화합물의 복합적 작용에 기인할 가능성을 뒷받침한다. 다만, 향후 단감 효소 처리 추출물에서 미동정 성분의 동정과 간에서의 에탄올 유도 간 보호 효과에 대한 작용기전 규명이 추가로 필요하다.


